
효소는 어떻게 스스로 활성을 조절할까 — 다른자리입체성 조절과 되먹임 억제
송준호(송쌤)송쌤생명과학입시연구소 대표
앞 글에서 저해제 얘기를 하면서 경쟁적·비경쟁적 저해를 구분했었죠. 그런데 세포 입장에서 생각해보면 이상한 점이 있습니다. 외부에서 억제 물질이 들어와야만 효소 활성이 조절된다면, 세포 스스로는 자기 효소를 못 끄나요? 당연히 그럴 리 없습니다. 세포는 자기가 만든 물질로 자기 효소를 켜고 끄는 정교한 시스템을 갖고 있는데, 그 핵심이 다른자리입체성 조절입니다.
활성부위가 아닌 '다른 자리'가 있습니다
많은 효소는 활성부위 말고도 조절 분자가 결합하는 자리를 따로 갖고 있습니다. 이걸 다른자리(allosteric site)라고 부르고, 여기에 조절 분자가 결합해서 효소의 활성을 바꾸는 걸 다른자리입체성 조절이라고 합니다. 조절 분자가 결합하면 효소 전체의 입체구조가 살짝 바뀌는데, 이 변화가 활성부위까지 전달되면서 활성부위가 기질과 더 잘 맞게 되거나(활성화) 반대로 안 맞게 됩니다(억제). 중요한 건 이 조절 분자가 활성부위를 직접 막는 게 아니라는 점이에요 — 완전히 다른 자리에 붙어서 "원격으로" 활성부위의 모양에 영향을 준다는 게 다른자리조절의 핵심입니다.
여러 소단위가 있으면 '협동'도 가능합니다
소단위(subunit) 여러 개로 이루어진 효소는 한 소단위의 활성부위에 기질이 결합하면, 그 자극이 다른 소단위로 전달돼서 나머지 활성부위들의 기질 친화도까지 함께 높아지는 경우가 있습니다. 이걸 협동성이라고 부르는데, 다른자리입체성 조절의 특수한 형태로 봅니다. 기질 자신이 일종의 활성화 신호가 되는 셈이에요 — 기질 농도가 어느 정도 이상 올라가면 반응 속도가 갑자기 확 빨라지는 이유가 여기 있습니다.
대사 경로 끝에서 시작을 막는다 — 되먹임 억제
다른자리조절이 실제로 가장 요긴하게 쓰이는 곳이 대사 경로입니다. 아미노산 하나를 만드는 데도 보통 여러 단계의 효소 반응이 줄줄이 이어지는데, 최종 산물이 충분히 쌓였는데도 계속 반응이 진행되면 세포 입장에선 재료와 에너지 낭비예요. 그래서 세포는 최종 산물 자신을 경로의 첫 번째 효소에 다른자리 억제제로 작용시켜서, 필요한 만큼 만들어지면 자동으로 생산을 멈추게 만듭니다. 이걸 되먹임 억제라고 하고, 트레오닌에서 아이소류신을 만드는 5단계 경로가 교과서에 자주 나오는 예시입니다.
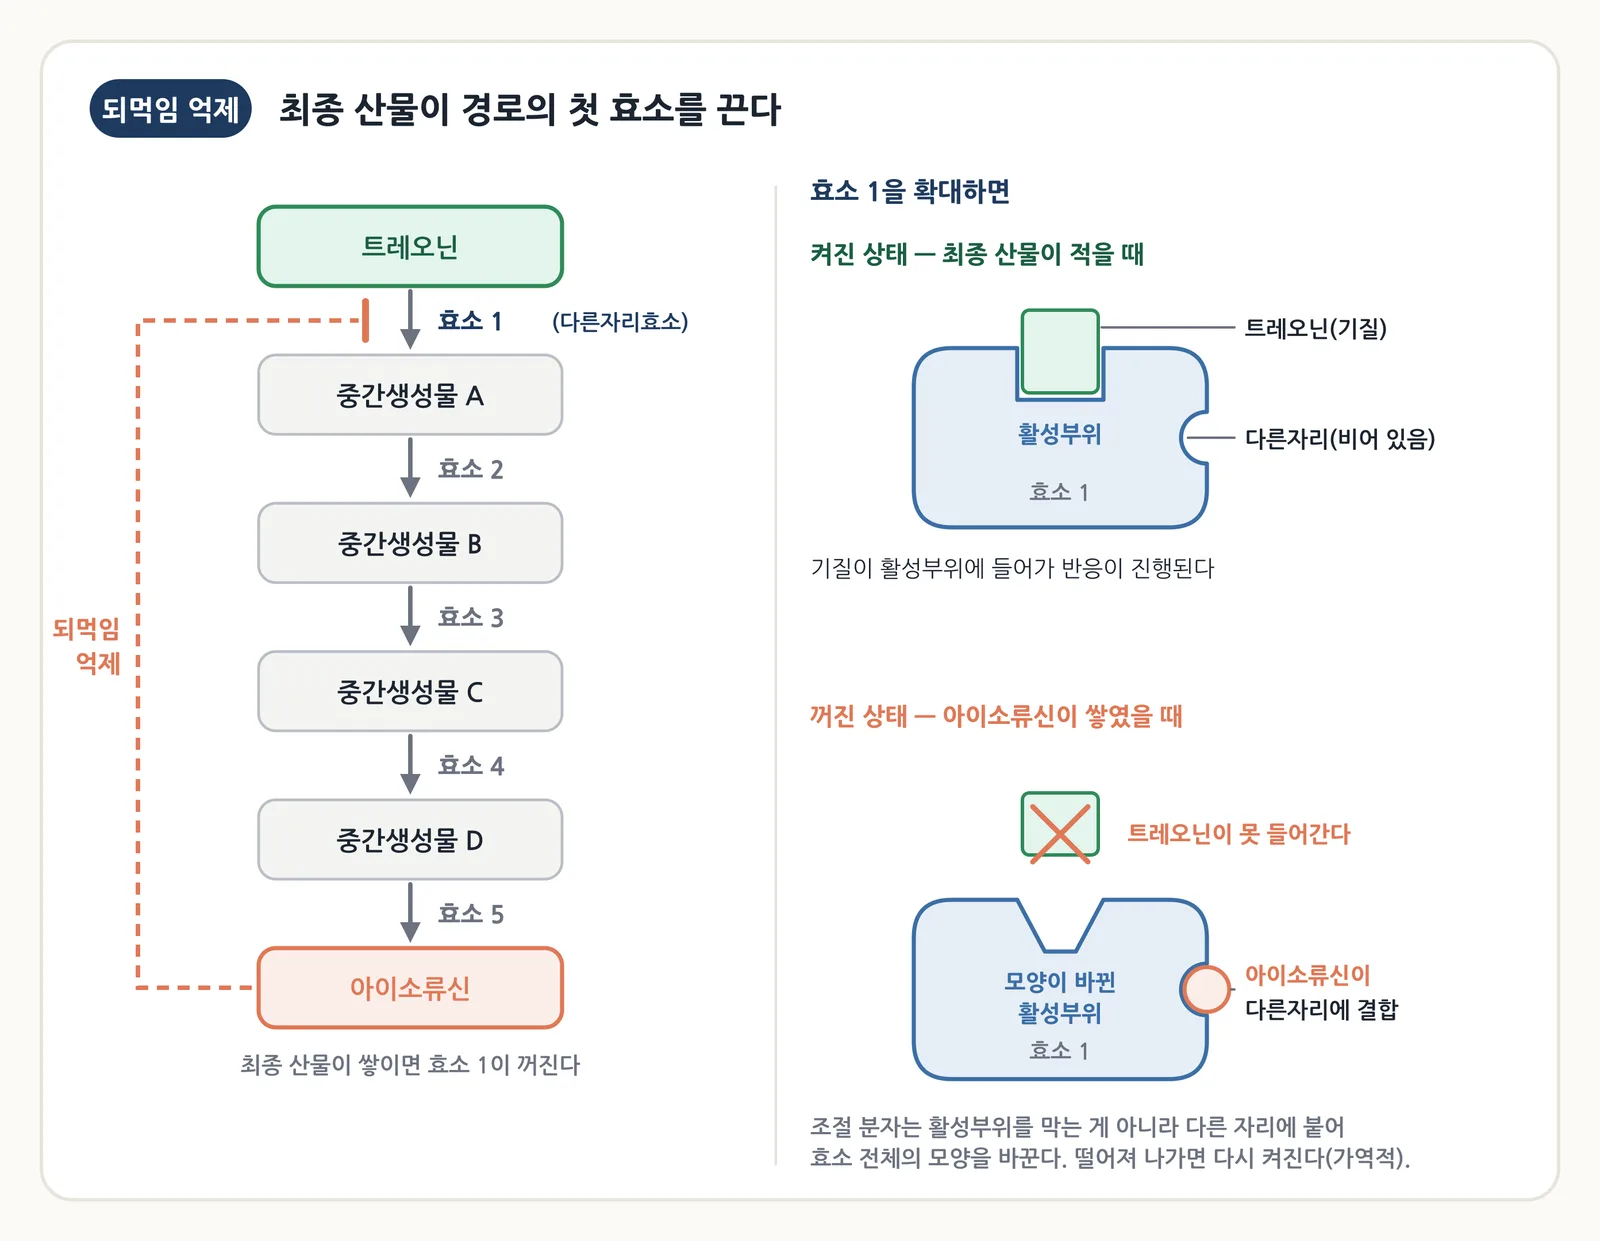
트레오닌 → 아이소류신 5단계 경로의 되먹임 억제와, 효소 1의 활성부위·다른자리 — 송쌤생명과학 자체 제작
쌤 한마디: 되먹임 억제를 "최종 산물이 효소를 파괴한다"거나 "효소와 영구적으로 결합한다"고 오해하는 경우가 있는데, 둘 다 틀렸습니다. 다른자리조절은 가역적이에요 — 최종 산물 농도가 떨어지면 억제제가 다시 떨어져 나가고 효소는 원래 활성을 회복합니다. 세포가 매 순간 필요한 만큼만 만드는 유연한 스위치라고 이해하면 됩니다.
위치도 조절 수단입니다 — 효소의 국소화
화학적으로 활성을 켜고 끄는 것 말고, 아예 효소를 특정 장소에 모아두는 것도 중요한 조절 방식입니다. 세포호흡에 관여하는 효소들이 미토콘드리아 내막에 순서대로 배열돼 있는 게 대표적인 예인데, 이렇게 관련된 효소들을 한 구조(세포소기관이나 막)에 몰아두면 반응 중간생성물이 다음 효소로 곧장 넘어갈 수 있어서 전체 대사 경로가 훨씬 효율적으로 돌아갑니다. 다른자리조절이 "속도를 켜고 끄는" 방식이라면, 국소화는 "애초에 반응이 잘 일어날 수 있는 자리를 만들어주는" 방식이라고 구분해서 이해하면 좋습니다.
틀린 내용이나 더 궁금한 점이 있으면 문의하기로 알려 주세요. 확인한 뒤 고치고, 고친 날짜를 위에 남깁니다.
함께 보면 좋은 글
이 개념과 이어지는 글이에요.