
아폽토시스(세포예정사) — 세포가 스스로 죽음을 선택할 때
송준호(송쌤)송쌤생명과학입시연구소 대표
사람 태아가 자궁 안에서 자랄 때, 손과 발은 처음엔 노처럼 물갈퀴가 있는 모양입니다. 그러다 발생이 진행되면서 손가락 사이 조직의 세포들이 정확히 정해진 시점에 스스로 죽어 없어지면서 손가락이 하나하나 분리돼요. 이건 사고나 손상이 아니라 정상적인 발생 과정의 일부입니다. 사람 몸에서는 하루에도 수백억 개의 세포가 이런 식으로 "예정된" 죽음을 맞는데, 이걸 아폽토시스(apoptosis, 세포예정사)라고 부릅니다. 세포가 죽는다는 게 항상 나쁜 신호는 아니라는 게, 이 개념에서 가장 먼저 뒤집어야 할 직관이에요.
예쁜꼬마선충이 밝혀낸 "정확히 131개"
이 현상이 유전적으로 정밀하게 프로그래밍되어 있다는 걸 처음 증명한 건 아주 작은 실험동물, 예쁜꼬마선충(Caenorhabditis elegans)이었습니다. 영국 분자생물학자 존 설스턴(John Sulston)은 1970~80년대에 이 선충의 발생 과정을 세포 하나하나 현미경으로 추적하는 방대한 작업을 했는데, 그 결과 이 선충은 발생 중 총 1090개의 체세포가 만들어지지만 그중 정확히 131개가 어른벌레가 되기 전에 정해진 시점에, 정해진 위치에서 죽는다는 걸 밝혀냈습니다. 신더 브레너(Sydney Brenner), 로버트 호비츠(Robert Horvitz)와 함께 이 세포예정사의 유전적 조절 메커니즘(ced-3, ced-4, ced-9 유전자)을 규명한 공로로 2002년 노벨 생리의학상을 받았어요. 세포가 "몇 개가, 언제, 어디서" 죽을지까지 유전자 수준에서 미리 정해져 있다는 걸 세포 단위로 완벽하게 추적해서 보여준 최초의 사례입니다.
카스파아제 — 세포를 분해하는 실행 효소
아폽토시스를 실제로 실행하는 건 카스파아제(caspase)라는 단백질분해효소 계열입니다. 이름 자체가 "시스테인(cysteine)을 활성부위로 쓰고, 아스파르트산(aspartic acid) 잔기 바로 뒤를 자른다"는 뜻의 합성어예요. 카스파아제도 앞서 배운 인산화 캐스케이드와 비슷하게 캐스케이드 방식으로 활성화되는데, 다른 점이 있다면 이건 인산기를 붙이는 게 아니라 다음 단계 카스파아제를 잘라서(단백질분해) 활성화한다는 거예요. 앞쪽 단계의 카스파아제를 개시 카스파아제(initiator caspase), 뒤쪽에서 실제로 세포 구조 단백질과 DNA를 잘게 분해하는 카스파아제를 실행 카스파아제(executioner caspase)라고 구분해서 부릅니다.
내재적 경로와 외재적 경로 — 두 가지 시작점
이 카스파아제 캐스케이드가 켜지는 경로는 크게 둘로 나뉩니다.
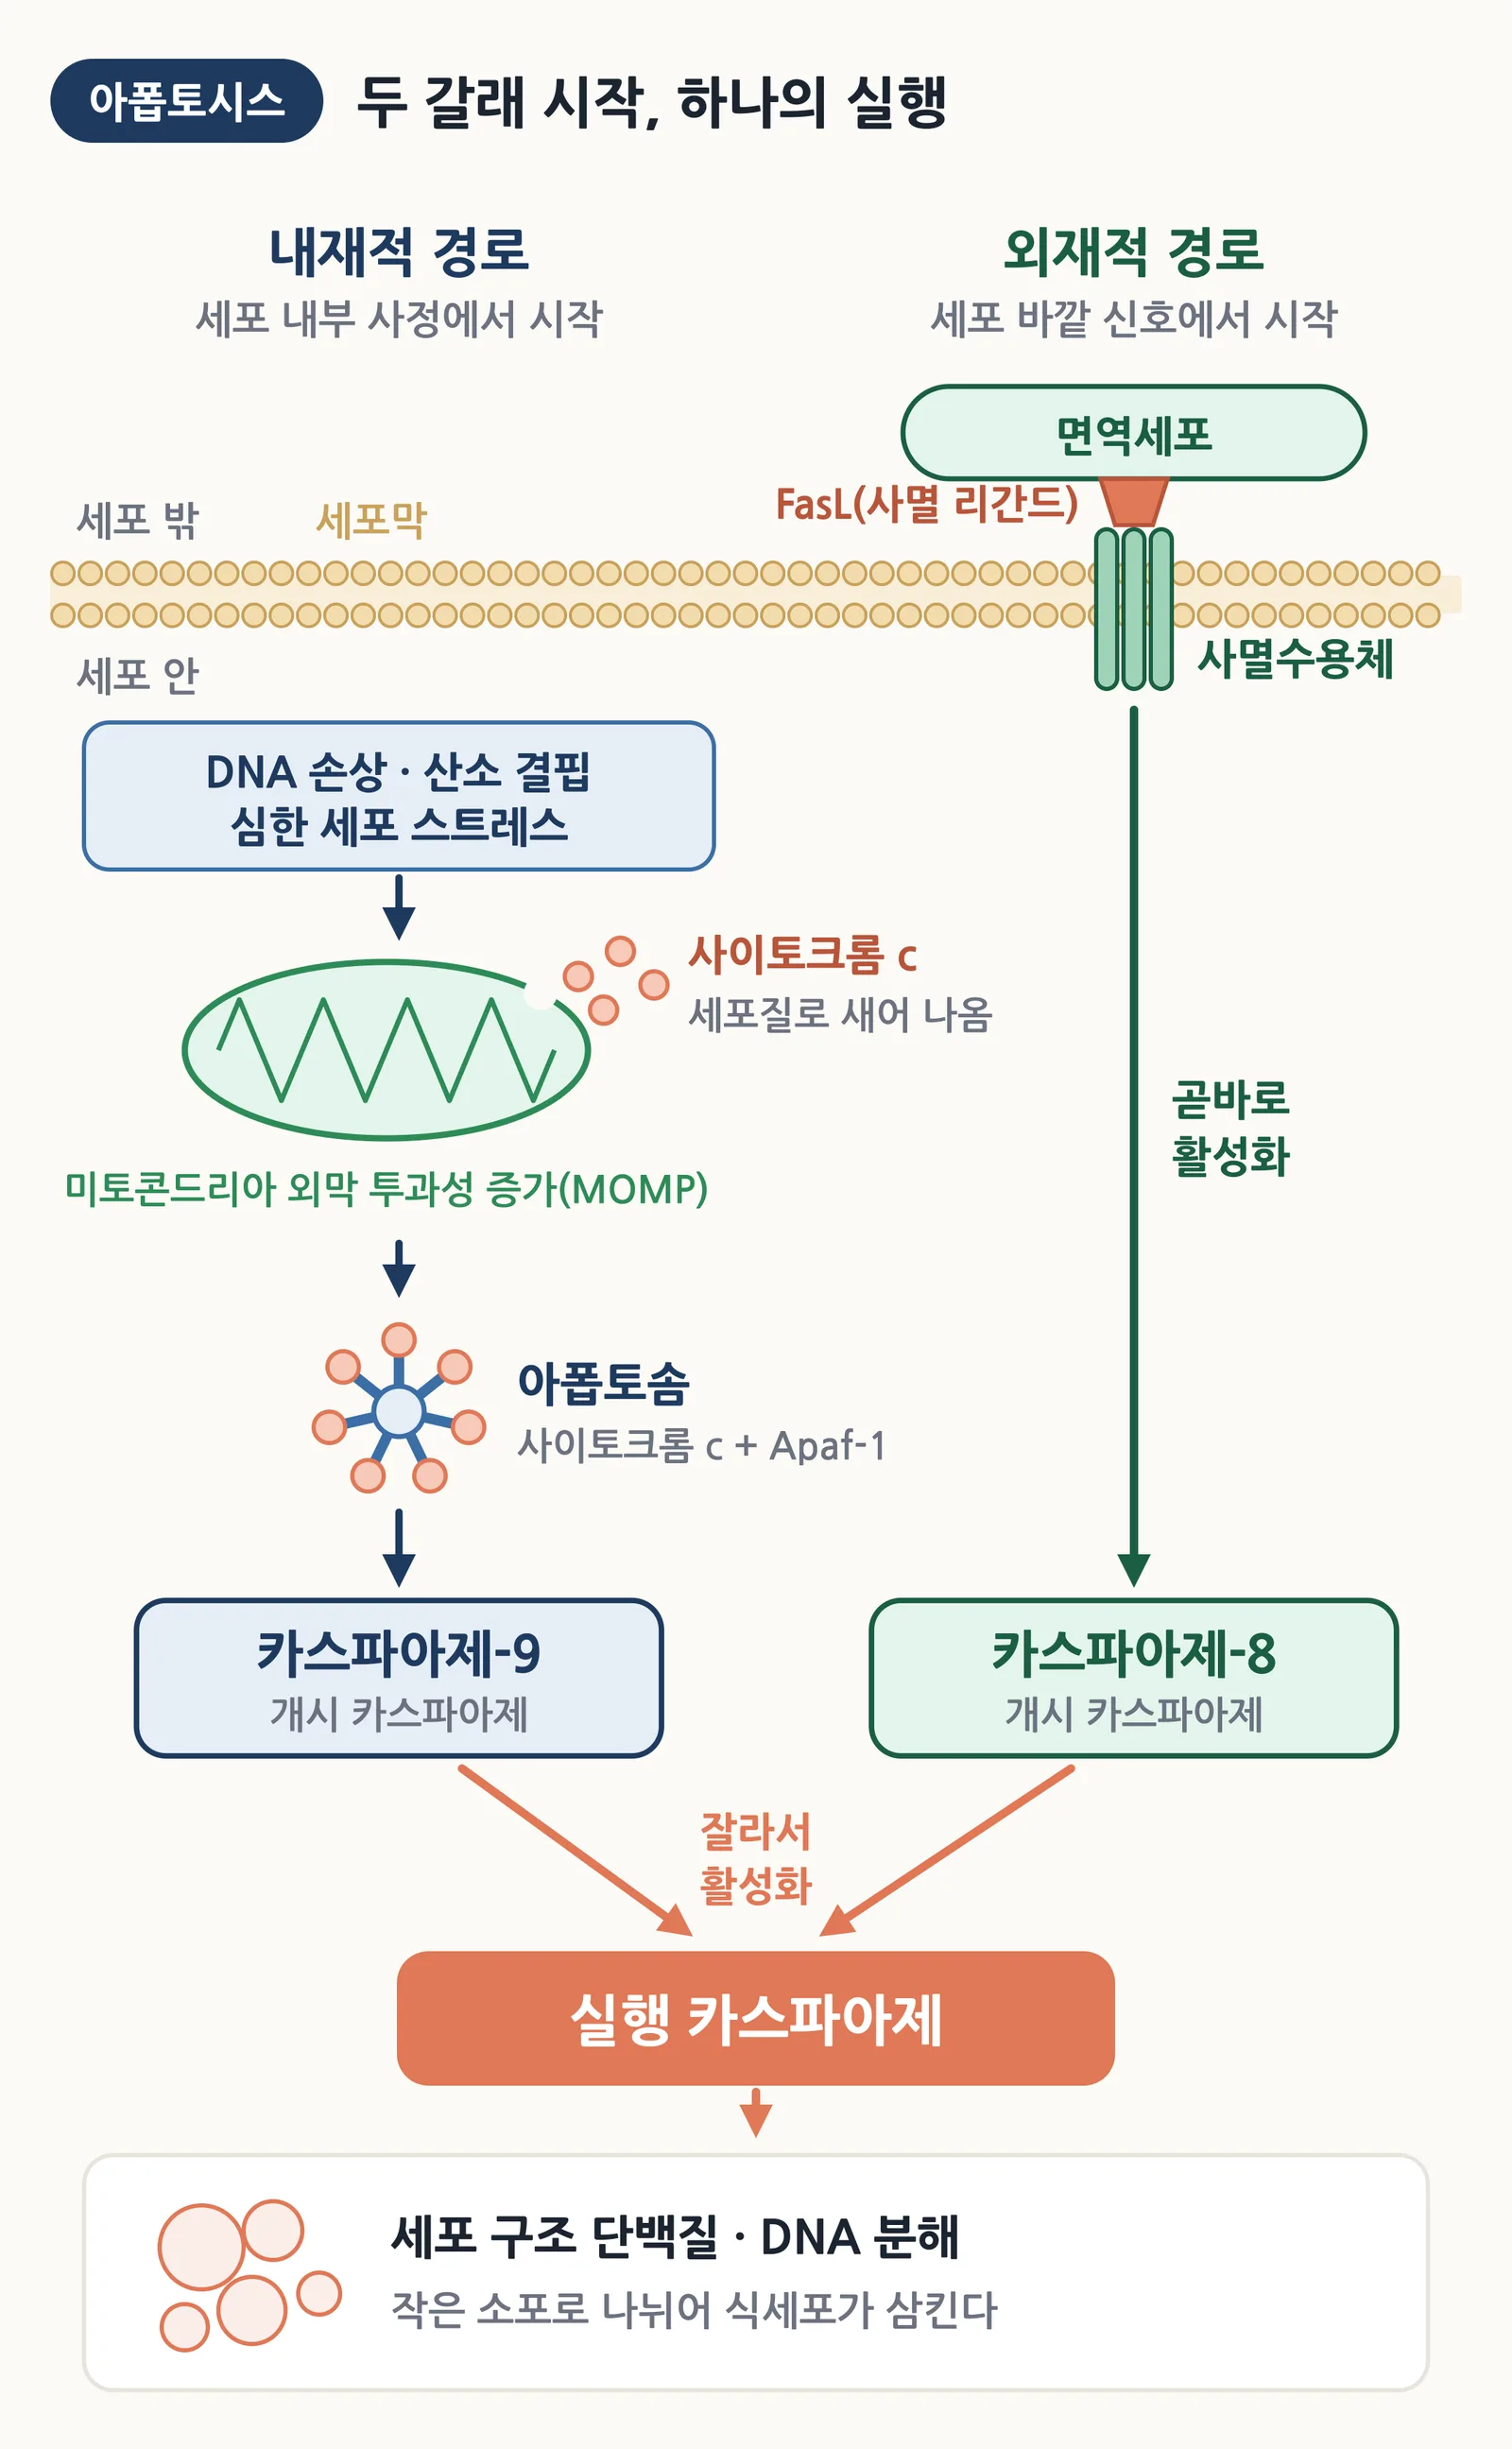
아폽토시스의 두 경로 — 내재적 경로(미토콘드리아·카스파아제-9)와 외재적 경로(사멸수용체·카스파아제-8)가 실행 카스파아제에서 합류한다 — 송쌤생명과학 자체 제작
내재적 경로(intrinsic pathway)는 DNA 손상, 산소 결핍, 심한 세포 스트레스처럼 세포 내부 사정으로 시작됩니다. 미토콘드리아 외막의 투과성이 커지면서(MOMP) 평소 막 사이 공간에 있던 사이토크롬c가 세포질로 새어나오고, 이게 Apaf-1 단백질과 결합해 아폽토솜(apoptosome)이라는 복합체를 만들어 카스파아제-9를 활성화합니다. 흥미로운 건 사이토크롬c가 원래 세포호흡(전자전달계)에서 일하던 단백질이라는 점이에요 — 에너지 생산에 쓰이던 단백질이 위치만 바뀌면 세포를 죽이는 신호가 된다는 게, 세포가 기존 부품을 얼마나 효율적으로 재활용하는지 보여주는 사례이기도 합니다.
외재적 경로(extrinsic pathway)는 반대로 세포 바깥에서 오는 신호로 시작됩니다. 면역세포가 분비한 FasL 같은 "사멸 리간드(death ligand)"가 표적 세포막의 사멸수용체(death receptor)에 결합하면, 카스파아제-8이 곧바로 활성화돼요. 두 경로는 각자 다른 카스파아제(9번과 8번)로 시작하지만, 결국 같은 실행 카스파아제를 활성화하는 지점에서 하나로 합류합니다 — 앞서 개념 9.3에서 본 "신호 통합"이 여기서도 똑같이 나타나는 셈이에요.
아폽토시스 vs 괴사 — 깔끔한 죽음과 지저분한 죽음
아폽토시스는 세포가 스스로 작게 오그라들고, 세포막은 온전히 유지된 채로 여러 개의 작은 소포(apoptotic body)로 나뉘어 주변 식세포에게 깔끔하게 삼켜집니다. 이 과정에서 세포 내용물이 밖으로 새어나가지 않기 때문에 염증 반응을 거의 일으키지 않아요. 반면 괴사(necrosis)는 외상이나 감염처럼 통제되지 않은 손상으로 세포가 부풀어 오르다 막이 터지면서 세포 내용물이 그대로 흘러나오는 방식이라, 주변 조직에 염증을 유발합니다. 같은 "세포의 죽음"이라도 계획된 것이냐 아니냐에 따라 결과가 이렇게 다릅니다.
이 조절이 무너지면 생기는 일
아폽토시스를 켜고 끄는 스위치가 고장 나면 심각한 질병으로 이어집니다. 암세포는 흔히 아폽토시스를 회피하는 돌연변이(예: 종양억제유전자 p53의 기능 상실, Bcl-2 계열 항아폽토시스 단백질의 과다 발현)를 갖고 있어서, 정상이라면 죽어야 할 손상된 세포가 죽지 않고 계속 증식합니다. 반대로 알츠하이머병·파킨슨병 같은 신경퇴행성질환에서는 오히려 아폽토시스가 과도하게 일어나 신경세포가 필요 이상으로 죽어나가는 것으로 알려져 있어요. 결국 아폽토시스는 "얼마나 일어나느냐"가 아니라 "필요한 만큼 정확하게 일어나느냐"가 관건인 셈입니다.
쌤 한마디 — 최근 항암제 개발에서 각광받는 접근 중 하나가 바로 이 아폽토시스 경로를 다시 "켜주는" 약물입니다. 이미 죽었어야 할 암세포에게 죽음 스위치를 대신 눌러주는 셈이죠. 세포생물학의 기초 개념 하나가 실제 신약 개발의 표적이 된다는 게, 이 챕터 전체를 관통하는 흥미로운 지점이에요.
이걸로 Ch.9(세포의 신호 교환) 다섯 개념을 모두 살펴봤습니다. 세포가 신호를 받고(9.2), 그 신호를 안에서 번역하고(9.3), 반응을 증폭·조율하고(9.4), 극단적으로는 스스로 죽음까지 선택하는(9.5) 과정을 쭉 따라온 셈이에요. 다음 챕터(Ch.10)에서는 시선을 조금 바꿔서, 세포가 어떻게 에너지를 만들어내는지 — 세포호흡을 다룹니다.
틀린 내용이나 더 궁금한 점이 있으면 문의하기로 알려 주세요. 확인한 뒤 고치고, 고친 날짜를 위에 남깁니다.
함께 보면 좋은 글
이 개념과 이어지는 글이에요.