
염색체의 구조 — DNA와 단백질의 포장
송준호(송쌤)송쌤생명과학입시연구소 대표
사람 세포 하나에 들어있는 DNA를 전부 풀어서 이으면 길이가 약 2m나 됩니다. 그런데 이걸 담고 있는 세포핵의 지름은 겨우 5~10마이크로미터, 그러니까 2m짜리 실을 지름 몇 마이크로미터짜리 공 안에 구겨 넣어야 하는 셈이에요. 심지어 아무렇게나 구겨 넣으면 안 되고, 필요할 때 특정 유전자 부위를 정확히 찾아서 열 수 있어야 합니다. 이걸 가능하게 하는 게 DNA와 단백질이 함께 이루는 정교한 포장 구조, 염색질(chromatin)입니다.
1단계 — 뉴클레오솜, 실에 꿴 구슬
가장 기본이 되는 포장 단위는 뉴클레오솜(nucleosome)입니다. 히스톤이라는 양전하를 띤 단백질 8개(H2A, H2B, H3, H4가 각각 2개씩)가 뭉쳐 원반 모양의 덩어리(히스톤 팔량체)를 이루고, 그 둘레를 DNA 이중나선이 약 1.65바퀴 감고 있는 구조예요. 히스톤이 양전하를 띠는 이유는 DNA의 음전하(인산기)를 강하게 끌어당겨 붙잡기 위해서입니다.
이 뉴클레오솜들이 짧은 연결 DNA(링커 DNA)로 이어지며 늘어선 모습이 전자현미경에서 "실에 꿴 구슬" 모양으로 보입니다. 여기에 히스톤 H1이 링커 DNA 부분에 결합해 뉴클레오솜들을 더 촘촘하게 끌어당기면, 굵기 약 30나노미터의 섬유 구조로 한 단계 더 응축됩니다.
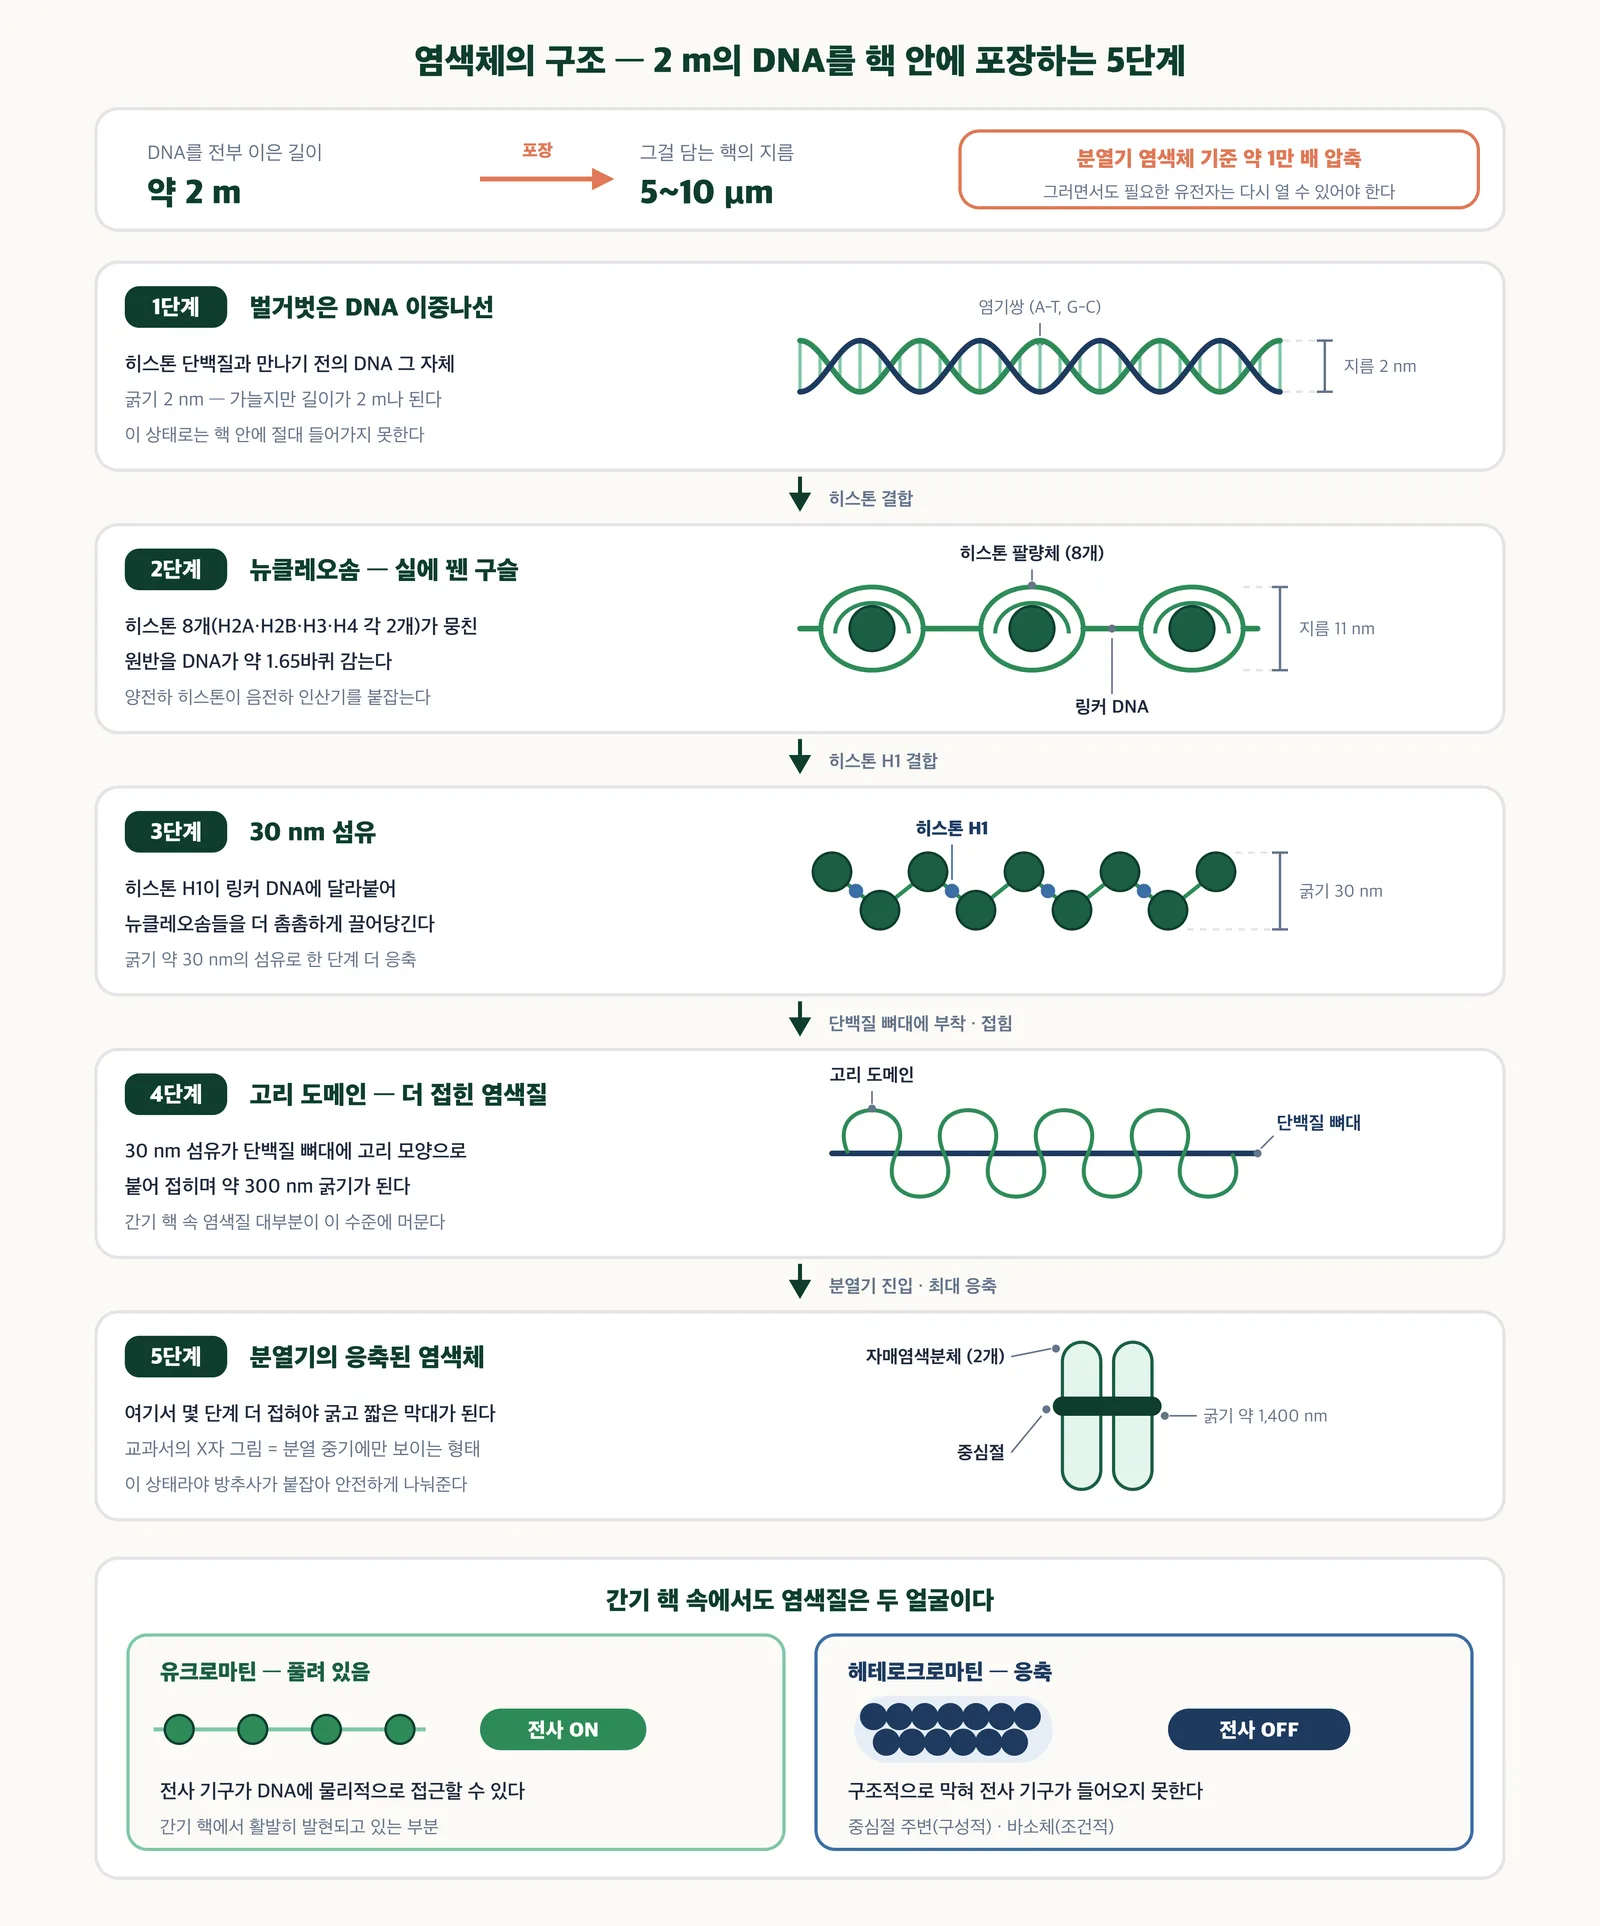
2m의 DNA가 지름 몇 마이크로미터의 핵에 들어가는 포장 단계 — 송쌤생명과학 자체 제작
풀려있어야 할 곳과 뭉쳐있어야 할 곳
간기(분열하지 않는 시기) 세포핵 안에서도 염색질은 전부 똑같이 뭉쳐있지 않습니다. 상대적으로 느슨하게 풀려 있어서 전사가 활발히 일어날 수 있는 부분을 유크로마틴(euchromatin), 빽빽하게 응축되어 접근이 어려운 부분을 헤테로크로마틴(heterochromatin)이라 부릅니다. 유전자가 발현되려면 전사 기구가 그 자리에 물리적으로 접근할 수 있어야 하는데, 헤테로크로마틴 상태에서는 이게 구조적으로 막혀 있는 거예요.
헤테로크로마틴에는 두 종류가 있습니다. 중심절 주변처럼 항상 응축된 상태로 유지되는 구성적(constitutive) 헤테로크로마틴과, 상황에 따라 응축되거나 풀리는 조건적(facultative) 헤테로크로마틴이에요. 여성의 두 X 염색체 중 비활성화된 쪽이 뭉쳐서 만드는 바소체(Barr body, 개념 15.2)가 조건적 헤테로크로마틴의 대표적인 예입니다 — 똑같은 X 염색체인데 한쪽은 유크로마틴으로 풀려 활발히 발현되고, 다른 한쪽은 헤테로크로마틴으로 뭉쳐 침묵하고 있는 거죠.
분열기에만 보이는 그 막대 모양
교과서에 나오는 X자 모양 염색체 그림은 사실 세포분열 중기에만 볼 수 있는 형태입니다. 간기에는 염색질이 핵 전체에 넓게 퍼져 있어서 빛현미경으로는 개별 염색체를 구분할 수 없어요. 세포가 분열을 준비하면서 30나노미터 섬유가 몇 단계 더 접히고 응축되어야 비로소 우리에게 익숙한 굵고 짧은 막대 모양이 되고, 이때만 광학현미경으로 개수를 세고 모양을 관찰할 수 있습니다(핵형 분석이 이 시기 세포를 이용하는 이유이기도 해요).
쌤 한마디 — "왜 굳이 분열할 때만 이렇게 꽁꽁 뭉치나요?"라고 묻는 학생이 있었는데, 좋은 질문이에요. 늘어져 있는 실 뭉치 상태로 딸세포에 정확히 반씩 나눠주려고 하면 엉키고 끊어지기 쉽습니다. 짧고 단단한 막대로 압축해야 방추사가 붙잡아서 안전하게 양쪽으로 끌고 갈 수 있는 거예요. 포장을 푸는 이유(발현)와 다시 감는 이유(분배)가 이렇게 상황에 따라 정반대입니다.
DNA가 어떻게 저장되고 포장되는지까지 봤으니, 이제 그 안에 담긴 정보가 실제로 어떻게 단백질로 번역되어 세포의 형질로 드러나는지가 궁금해질 차례입니다. Ch.17 "유전자의 발현"에서 이어집니다.
틀린 내용이나 더 궁금한 점이 있으면 문의하기로 알려 주세요. 확인한 뒤 고치고, 고친 날짜를 위에 남깁니다.
함께 보면 좋은 글
이 개념과 이어지는 글이에요.