
세포골격 — 세포 안에도 뼈대가 있다
송준호(송쌤)송쌤생명과학입시연구소 대표
지난 글에서 미토콘드리아와 엽록체를 보면서 다음은 세포골격이라고 예고했었죠. 세포는 물풍선처럼 흐물흐물할 것 같지만, 실제로는 세포질 전체에 뻗어 있는 단백질 섬유 그물이 모양을 잡아주고 있습니다. 이 그물을 세포골격(cytoskeleton)이라고 부르는데, 이름 그대로 뼈대 역할만 하는 게 아니라 세포 안에서 물건을 실어 나르고, 세포 자체를 움직이게 하는 일까지 다 합니다.
사실 세포골격은 생각보다 뒤늦게 발견된 구조입니다. 광학현미경 시절에는 세포질이 그냥 균일한 액체(cytosol)로 채워져 있다고 여겨졌어요. 이 섬유 그물의 실체가 제대로 드러난 건 1950~60년대 전자현미경이 보급되면서부터입니다 — 배율이 훨씬 높아지고 나서야 "빈 공간"처럼 보이던 세포질 안에 정교한 섬유 네트워크가 있다는 게 확인됐습니다.
굵기부터 다른 세 종류의 섬유
세포골격은 한 가지 재료로 된 게 아니라 굵기와 구성 단백질이 전혀 다른 세 종류의 섬유로 이루어져 있습니다. 이 셋을 따로따로 외우려 하지 말고, "가장 굵은 것부터 가장 튼튼한 것까지" 순서로 기억해두면 편해요.
구분 | 미세소관 | 미세섬유(액틴섬유) | 중간섬유 |
|---|---|---|---|
굵기 | 약 25nm(가장 굵음) | 약 7nm(가장 가늘음) | 약 8~12nm(중간) |
구성 단백질 | 튜불린 | 액틴 | 세포 종류마다 다름(케라틴 등) |
안정성 | 계속 조립·분해됨(동적) | 계속 조립·분해됨(동적) | 한번 조립되면 잘 안 풀림(안정적) |
미세소관 — 세포 안의 철도
미세소관은 알파-튜불린과 베타-튜불린이 한 쌍으로 붙은 이형이량체(heterodimer)가 나선형으로 쌓여 만들어진 속이 빈 관입니다. 이 이량체가 한 줄로 길게 이어진 것이 원섬유(protofilament)이고, 원섬유 13개가 나란히 붙어 원통 벽을 이루는 구조예요. 대부분의 동물세포에서는 중심체(centrosome)라는 곳에서 뻗어 나오는데, 중심체 안에는 미세소관 세 개짜리 다발 9개가 고리 모양으로 배열된 중심립(centriole) 한 쌍이 직각으로 들어 있습니다.
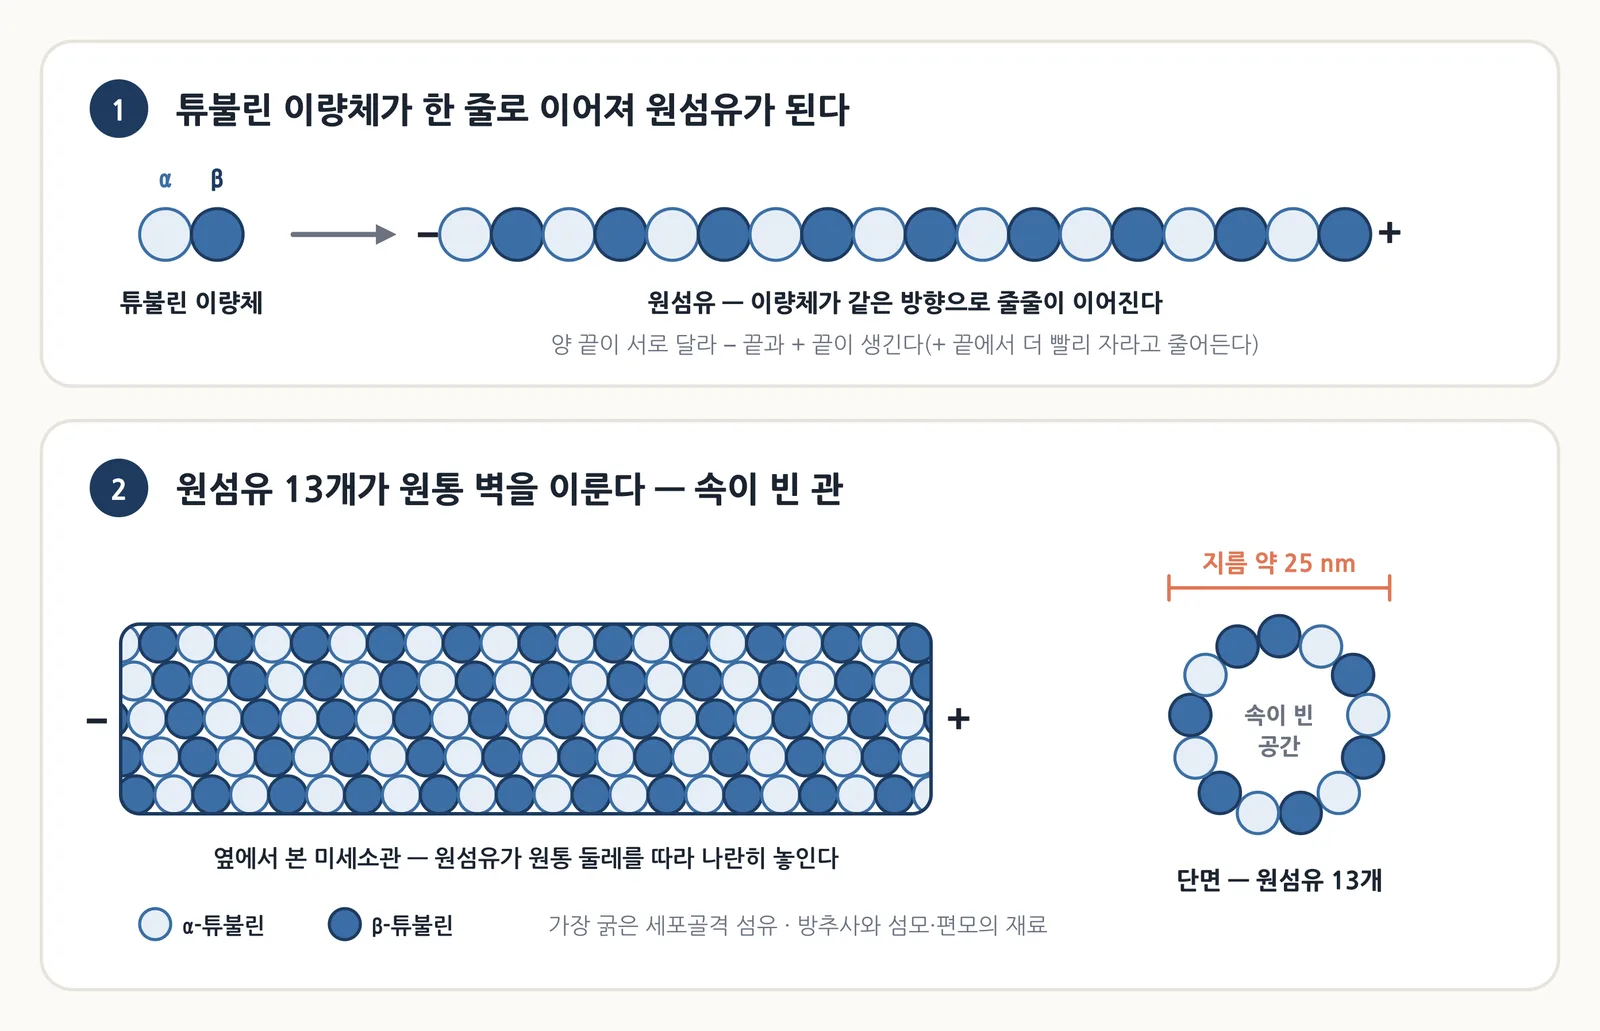
α·β-튜불린 이량체 → 원섬유 → 원섬유 13개가 이룬 속이 빈 관(지름 약 25 nm) — 송쌤생명과학 자체 제작
미세소관의 진짜 재미있는 역할은 철도 역할입니다. 키네신(kinesin)과 다이닌(dynein)이라는 운동단백질이 ATP를 소모하며 미세소관을 따라 물건(소포, 소기관)을 끌고 이동하는데, 방향이 서로 반대예요 — 키네신은 대개 세포 중심에서 바깥으로, 다이닌은 바깥에서 중심 쪽으로 움직입니다. 그리고 세포분열 시기에 염색체를 양쪽으로 끌어당기는 방추사도 결국 미세소관입니다.
여기서 하나 짚고 넘어갈 게 있는데, 식물세포는 중심립이 없습니다. 그런데도 세포분열 때 방추사는 멀쩡히 만들어져요 — 중심립이 미세소관을 "꼭 있어야만 만드는" 유일한 시작점이 아니라, 핵막 주변 여러 지점에서도 미세소관 형성이 시작될 수 있기 때문입니다. 즉 중심립은 미세소관 형성을 돕는 구조이지, 절대적으로 필요한 부품은 아닙니다.
미세소관이 약물 표적으로도 쓰인다는 것도 알아두면 좋습니다. 항암제로 쓰이는 탁솔(paclitaxel)은 미세소관을 지나치게 안정시켜서 분해가 안 되게 만드는데, 그러면 세포가 분열 중기 이후로 못 넘어가고 멈춰버립니다. 암세포는 정상세포보다 훨씬 빠르게 분열을 반복하니 이 약물에 더 크게 타격을 받는 원리예요.
미세섬유(액틴섬유) — 수축과 움직임의 주역
액틴 단백질이 두 가닥으로 꼬여 만들어진 미세섬유는 세포막 바로 안쪽에 특히 많이 몰려 있어서, 세포의 모양을 유지하고 세포막이 움직이는 걸 돕습니다. 미세소관과 마찬가지로 미세섬유도 양 끝의 성질이 다른 극성 구조예요(+ 말단에서 더 빠르게 자라고, − 말단에서 상대적으로 빠지는 식) — 이 비대칭성 덕분에 세포가 특정 방향으로만 섬유를 늘리며 움직일 수 있습니다. 근육세포에서는 마이오신(myosin)이라는 운동단백질과 짝을 이뤄 근수축을 일으키고, 동물세포가 세포질분열을 할 때 세포 한가운데를 조여서 둘로 나누는 수축고리(contractile ring)도 액틴-마이오신입니다. 아메바가 위족(pseudopod)을 뻗어 이동하는 것도 액틴 섬유가 그 자리에서 새로 조립되고 풀리기를 반복하기 때문이에요.
중간섬유 — 가장 튼튼하고 가장 안정적인 뼈대
이름이 "중간"인 이유는 굵기가 미세소관과 미세섬유의 중간이라서인데, 정작 특징은 굵기보다 안정성에 있습니다. 미세소관·미세섬유는 필요할 때마다 계속 조립되고 풀리는 동적인 구조인 반면, 중간섬유는 한번 만들어지면 쉽게 풀리지 않아서 세포에 기계적인 힘이 가해져도 잘 버팁니다. 그래서 세포 모양을 오래 유지해야 하는 곳(예: 피부세포의 케라틴)이나 핵막을 안쪽에서 지지하는 핵층(nuclear lamina)에 특히 많습니다.
쌤 한마디: 세 섬유를 구성하는 단백질이 세포마다 다 똑같은 건 아닙니다. 미세소관의 튜불린과 미세섬유의 액틴은 어느 세포든 거의 동일하지만, 중간섬유는 세포 종류에 따라 다른 단백질(피부세포는 케라틴, 신경세포는 뉴로필라멘트 등)을 씁니다. 그래서 암 진단에서 "이 종양세포가 어떤 조직에서 왔는가"를 판단할 때 어떤 중간섬유 단백질을 갖고 있는지를 단서로 쓰기도 해요.
편모와 섬모 — 미세소관으로 만든 운동기관
정자의 편모나 기관지 상피세포의 섬모처럼, 세포 자체를 움직이거나 주변 액체를 밀어내는 구조도 결국 미세소관으로 만들어집니다. 단면을 잘라보면 미세소관 두 개짜리 쌍 9개가 바깥쪽을 둥글게 감싸고, 가운데에 미세소관 두 개가 더 있는 "9+2 배열"이 보입니다. 각 미세소관 쌍 사이를 다이닌 팔이 연결하고 있는데, 이 다이닌이 ATP를 쓰며 옆의 쌍을 밀어내듯 미끄러뜨리면(sliding) 전체가 휘어지면서 편모·섬모가 움직입니다.
앞서 본 중심립도 미세소관 다발 9개가 고리 모양이라 헷갈릴 수 있는데, 둘은 배열이 다릅니다. 중심립은 세 개짜리 다발 9개가 가운데에 아무것도 없이 도는 "9+0" 구조이고, 편모·섬모의 축사(axoneme)는 두 개짜리 쌍 9개 + 중심의 미세소관 한 쌍이 더해진 "9+2" 구조입니다. 실제로 편모는 세포 밑동의 기저체(basal body)에서 자라나는데, 이 기저체가 바로 중심립과 같은 9+0 구조라서 — 중심립이 기저체로 전환되며 거기서부터 9+2 축사가 뻗어 나오는 겁니다.
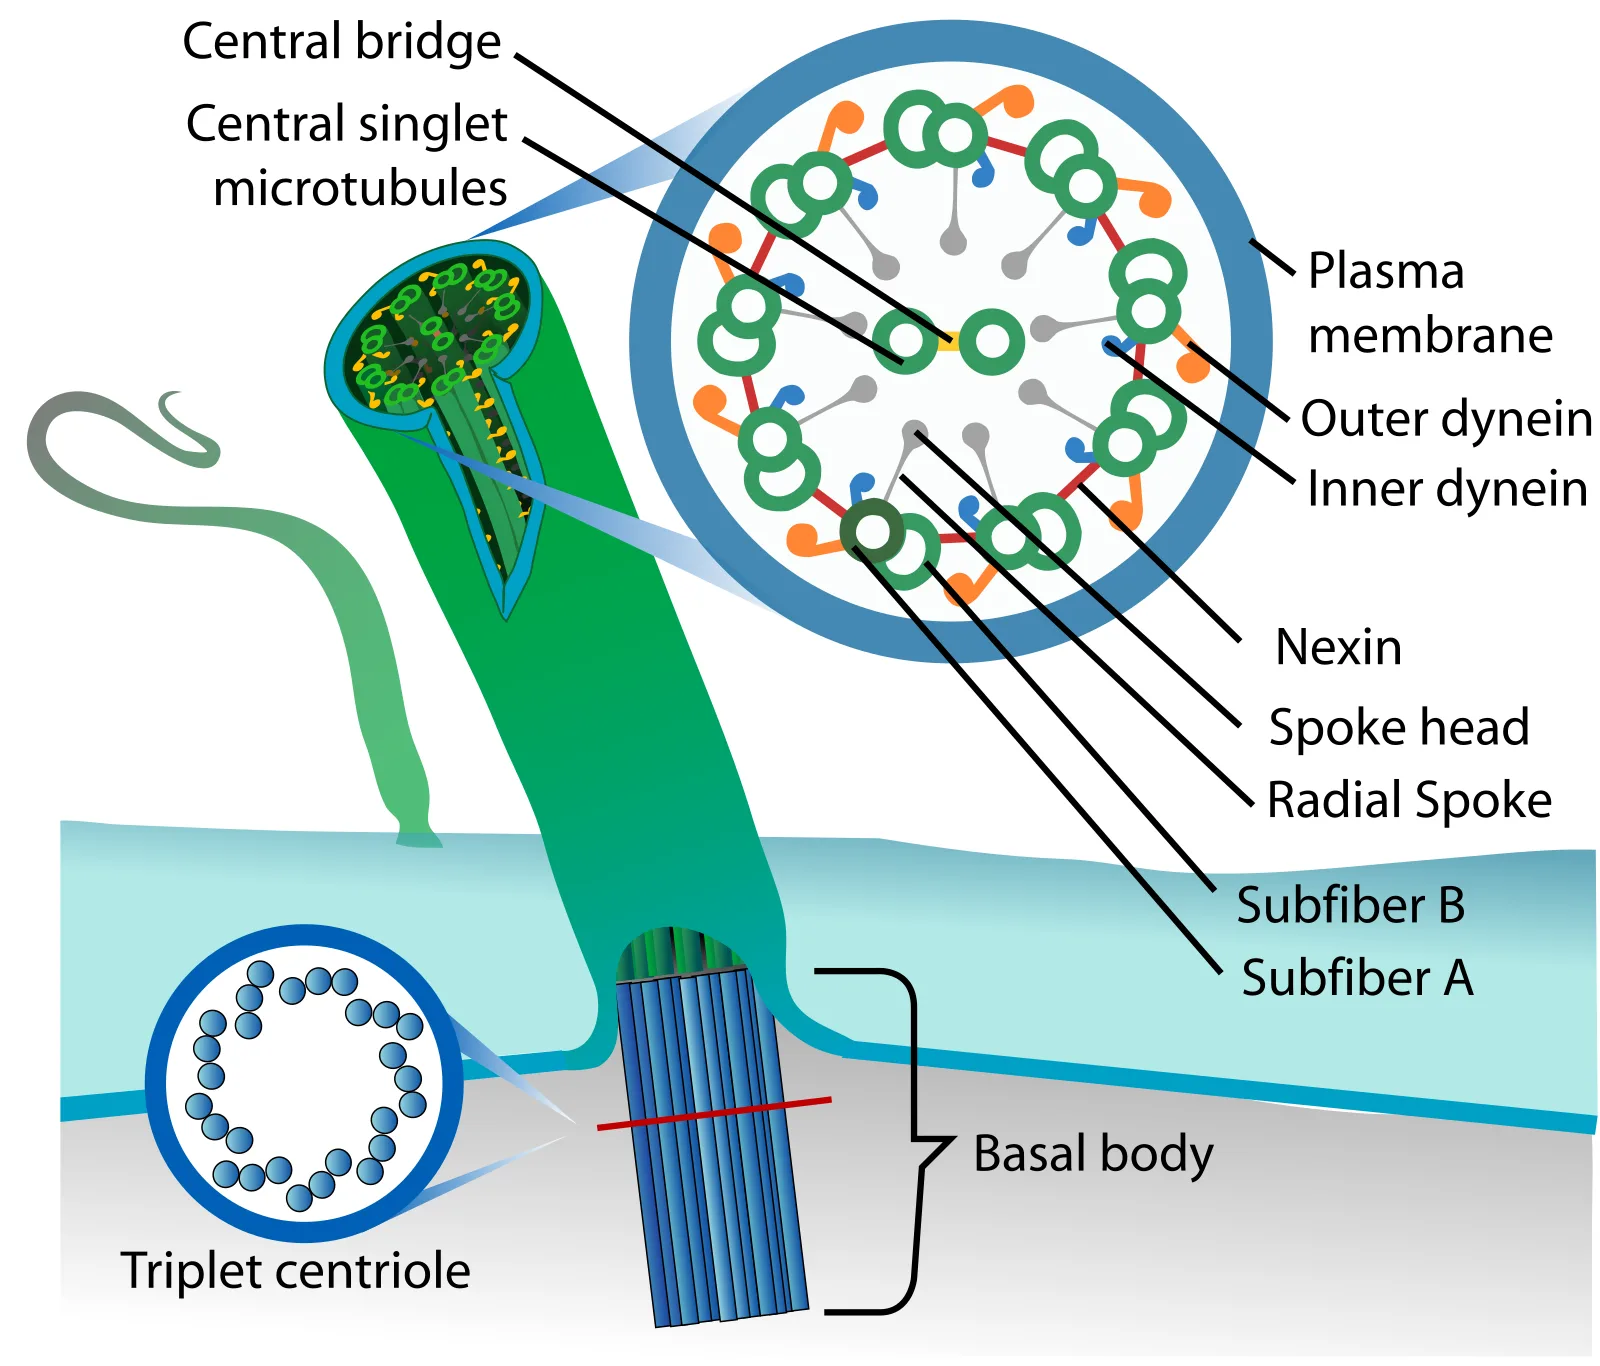
출처: Wikimedia Commons, 저작자: Mariana Ruiz (LadyofHats), Public domain — 원본 보기
정리하면, 세포골격은 굵기와 안정성이 다른 세 섬유(미세소관·미세섬유·중간섬유)가 각자의 역할로 세포를 지지하고, 필요할 땐 운동단백질과 짝을 이뤄 물건을 나르거나 세포 자체를 움직이게 하는 시스템입니다. 다음 글에서는 세포 바깥쪽, 그러니까 세포벽·세포외기질처럼 세포 표면을 둘러싼 구조와 이웃 세포와의 연결을 살펴보겠습니다.
틀린 내용이나 더 궁금한 점이 있으면 문의하기로 알려 주세요. 확인한 뒤 고치고, 고친 날짜를 위에 남깁니다.
함께 보면 좋은 글
이 개념과 이어지는 글이에요.