
유전자 연관과 재조합
송준호(송쌤)송쌤생명과학입시연구소 대표
멘델의 독립의 법칙은 사실 조건이 하나 숨어 있었습니다. 두 유전자가 서로 다른 염색체 위에 있을 때만 성립한다는 조건이에요. 그런데 사람은 유전자가 약 2만 개인데 염색체는 23쌍뿐입니다. 한 염색체에 수백~수천 개의 유전자가 같이 타고 있다는 뜻이죠. 이렇게 같은 염색체 위에 있어서 함께 유전되는 경향을 유전자 연관(linkage)이라 합니다.
독립의 법칙이 깨지는 순간
같은 염색체에 있는 두 유전자는 감수분열에서 원칙적으로 한 몸처럼 같이 움직입니다. 그래서 이형접합체(AaBb)를 검정교배하면 멘델의 예측(1:1:1:1)과 다르게, 부모형(어버이형) 조합이 압도적으로 많고 새로운 조합은 훨씬 적게 나옵니다. 모건의 실험실이 초파리에서 처음 이 패턴을 확인했어요.
그런데 완전히 붙어 다니지는 않는다 — 교차
여기서 흥미로운 지점이 나옵니다. 연관된 유전자라도 가끔 새로운 조합(재조합형)이 생겨요. 원인은 감수분열 I 전기에 상동염색체가 짝을 짓는(시냅스) 동안 일어나는 교차(crossing over)입니다. 비자매염색분체 사이에서 염색분체 조각이 서로 맞바뀌면서, 원래 부모 염색체에는 없던 새로운 대립유전자 조합이 만들어지는 거예요.
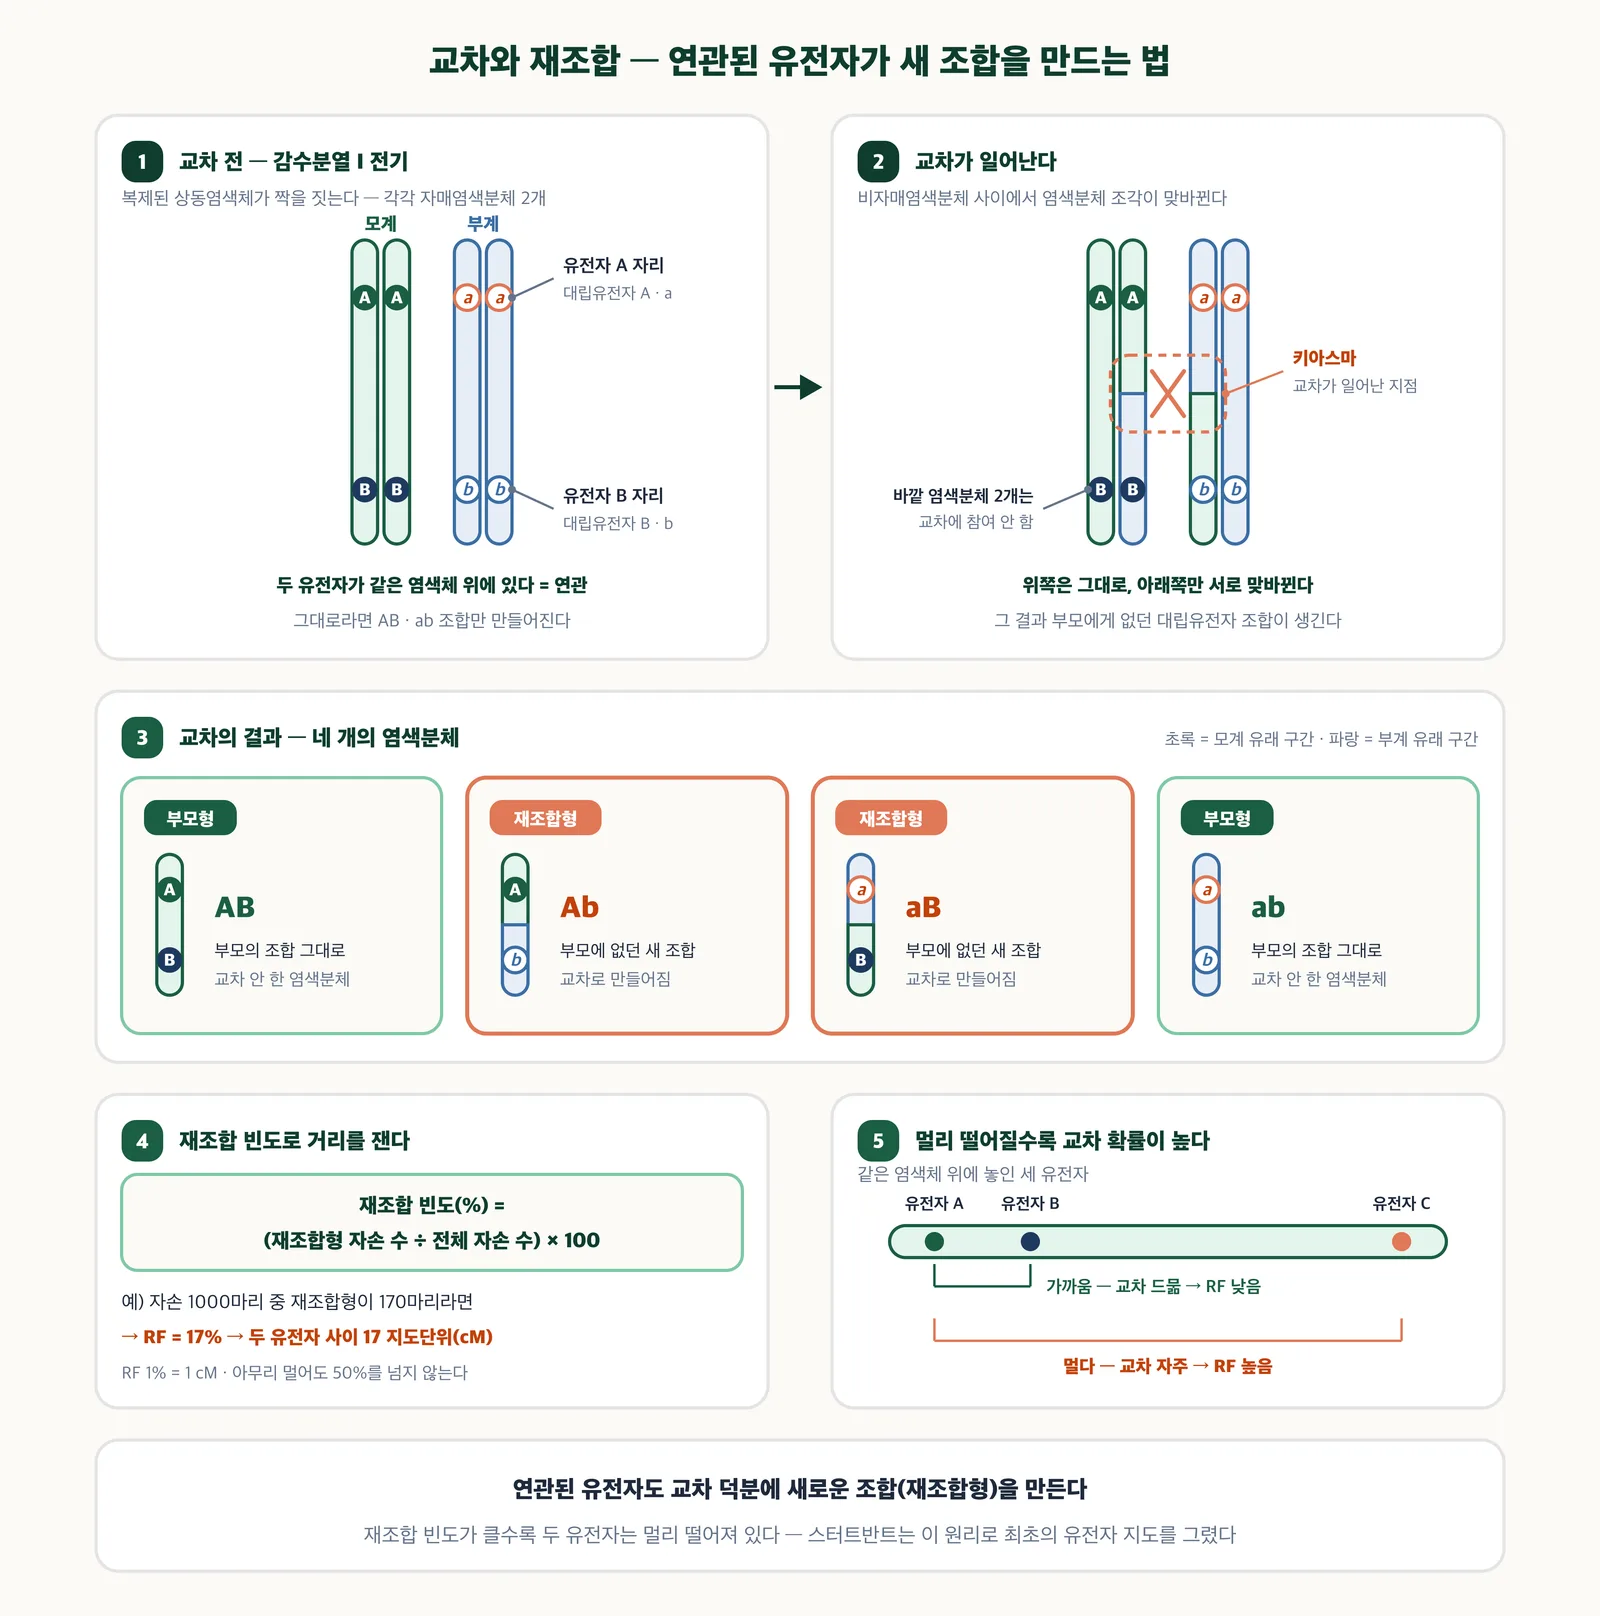
교차가 만드는 재조합형 염색분체와 재조합 빈도 — 송쌤생명과학 자체 제작
재조합 빈도로 유전자 사이 거리를 잰다
여기서 스터트반트(Alfred Sturtevant)의 통찰이 결정적이었습니다. 두 유전자가 염색체 위에서 멀리 떨어져 있을수록 그 사이에서 교차가 일어날 확률도 높다는 거예요. 반대로 아주 가까이 붙어 있으면 교차가 거의 안 일어나고 거의 항상 같이 유전됩니다.
그래서 재조합형 개체의 비율(재조합 빈도, RF)을 세면 두 유전자 사이의 상대적 거리를 추정할 수 있습니다.
재조합 빈도(%) = (재조합형 자손 수 ÷ 전체 자손 수) × 100
이 값 1%를 유전자 지도에서 1 지도단위(map unit, 센티모건 cM)로 정의합니다. 재조합 빈도가 커질수록 실제 거리도 멀다고 보면 되는데, 다만 50%를 넘어가진 않습니다 — 너무 멀리 떨어져 있거나(또는 아예 다른 염색체에 있어서) 교차가 그 사이 어디선가는 항상 일어나면, 통계적으로 독립적으로 배분되는 것과 똑같아 보이기 때문이에요. 즉 RF 50%는 "연관 없음(독립의 법칙 그대로)"과 구별이 안 됩니다.
쌤 한마디 — 스터트반트가 이 아이디어로 초파리 X염색체 유전자들의 최초의 유전자 지도를 그린 게 1913년, 놀랍게도 대학 학부생이었을 때입니다. 모건 실험실에서 하룻밤 만에 계산을 끝냈다는 일화가 유명해요. 지금 우리가 "유전자 지도"라는 개념 자체를 당연하게 받아들이는 출발점이 사실 학부생의 밤샘 계산이었던 셈이죠.
지도단위는 실제 거리(염기쌍)와 정확히 비례하지 않는다
여기서 하나만 짚고 갈게요. 지도단위는 어디까지나 교차 빈도 기반의 상대적 거리입니다. 염색체 위에서 교차가 일어나기 쉬운 자리와 어려운 자리가 실제로는 균일하지 않기 때문에, 지도단위 거리와 실제 DNA 염기쌍 수(물리적 거리)가 항상 정비례하지는 않아요. 그래도 유전자들의 상대적인 순서와 배치를 알아내는 데는 충분히 유용해서, DNA 염기서열 분석 기술이 나오기 훨씬 전부터 염색체 위 유전자 배치를 추정하는 유일한 방법이었습니다.
같은 염색체 위 유전자들이 서로 얽혀 있다는 걸 알았으니, 이제 그 염색체 자체에 이상이 생기면 어떻게 되는지가 궁금해질 차례입니다. 개념 15.4에서 염색체 수·구조 이상을 다룹니다. 반성유전 배경은 개념 15.2를 참고하세요.
틀린 내용이나 더 궁금한 점이 있으면 문의하기로 알려 주세요. 확인한 뒤 고치고, 고친 날짜를 위에 남깁니다.
함께 보면 좋은 글
이 개념과 이어지는 글이에요.