
선택은 어떤 모양으로 작동하는가 — 세 유형과 성적 선택
송준호(송쌤)송쌤생명과학입시연구소 대표
앞 글에서 세 가지 힘 중 적응을 만드는 것은 자연선택뿐이라고 했습니다. 이제 그 자연선택을 확대해서 볼 차례예요.
그런데 들어가기 전에 단어 하나를 먼저 고쳐야 합니다. 적응도라는 말입니다. 이 단어를 잘못 이해한 채로 이 글을 읽으면 뒤에 나오는 성적 선택에서 반드시 막힙니다.
적응도는 '강함'이 아닙니다 — 가장 많이 틀리는 지점
학생들에게 "적응도가 높다는 게 무슨 뜻이냐"고 물으면 이런 답이 나옵니다. 힘이 세다, 튼튼하다, 오래 산다, 환경에 잘 견딘다.
전부 아닙니다. 정의는 하나뿐이에요.
적응도 = 그 개체가 다음 세대의 유전자 풀에 남긴 자손의 수
오직 번식입니다. 아무리 크고 강하고 100년을 살아도 자손을 하나도 남기지 못했다면 그 개체의 적응도는 0이에요. 반대로 약하고 일찍 죽어도 자손을 많이 남겼다면 적응도가 높습니다.
그럼 생존은 아무 상관이 없느냐? 그건 아닙니다. 생존은 번식의 전제 조건이에요. 번식 연령까지 살아남아야 자손을 남길 수 있으니까요. 다만 생존은 수단이고 기준은 어디까지나 번식입니다. 번식이 끝난 뒤의 수명은 적응도에 직접 기여하지 않아요.
그래서 실제로 쓰는 값은 상대적 적응도(relative fitness)입니다. 절대적인 자손 수가 아니라, 같은 집단의 다른 유전자형과 견준 상대적인 기여도예요. 가장 많이 남긴 유전자형을 1.0으로 놓고 나머지를 비율로 표시합니다.
숫자로 보면 간단합니다. 어떤 집단에서 유전자형별 평균 자손 수를 셌더니 이렇게 나왔다고 합시다.
| 유전자형 | 평균 자손 수 | 계산 | 상대적 적응도 |
|---|---|---|---|
| AA | 6 | 6 ÷ 6 | 1.0 |
| Aa | 4.5 | 4.5 ÷ 6 | 0.75 |
| aa | 1.5 | 1.5 ÷ 6 | 0.25 |
기준을 6으로 잡고 전부 나눈 것뿐입니다. 이렇게 두면 환경이 달라져 전체 자손 수가 늘거나 줄어도 유전자형 사이의 상대적 관계는 그대로 읽을 수 있어요. 자연선택이 보는 것은 절대량이 아니라 이 차이입니다.
하나 더 짚을 게 있습니다. 자연선택은 유전자형이 아니라 표현형에 작용합니다. 포식자는 상대의 유전자를 읽지 않고 겉모습을 봐요. 선택의 대상은 표현형이고, 그 결과가 유전자형 빈도와 대립유전자 빈도의 변화로 나타나는 겁니다. 그래서 겉으로 드러나지 않는 이형접합자 안의 열성 대립유전자는 선택을 잘 피해 갑니다 — 앞 글의 보인자 계산에서 보인자가 발병자보다 198배 많았던 이유가 정확히 이것이에요.
선택의 세 유형 — 분포를 밀거나, 좁히거나, 쪼갠다
이제 집단 전체를 그래프로 봅시다. 가로축은 어떤 연속적인 형질(예를 들어 몸 크기), 세로축은 그 값을 가진 개체의 수입니다. 대개 가운데가 볼록한 산 모양 분포가 나와요.
자연선택이 이 산을 어떻게 바꾸느냐에 따라 세 유형으로 나뉩니다.
① 방향성 선택(directional selection). 분포의 한쪽 끝에 있는 개체가 유리한 경우입니다. 선택이 계속되면 산 전체가 그쪽으로 통째로 밀려갑니다. 산의 폭은 크게 달라지지 않고 봉우리의 위치가 옮겨 가는 모양이에요.
- 환경이 한 방향으로 바뀔 때 흔히 나타납니다. 가뭄이 들어 딱딱한 씨앗만 남으면 부리가 두꺼운 쪽이 유리해지고, 집단의 평균 부리 두께가 올라갑니다.
- 항생제를 쓰면 저항성 있는 세균만 살아남아, 세균 집단 전체가 저항성 쪽으로 이동합니다. 사람이 만든 방향성 선택의 대표적 사례죠.
- 주의할 점 — 환경이 다시 바뀌면 방향도 바뀝니다. 비가 많이 온 해에는 반대쪽으로 되돌아가요. 방향성 선택은 "계속 한 방향으로 발전한다"는 뜻이 아닙니다.
② 안정화 선택(stabilizing selection). 분포의 양쪽 끝이 모두 불리하고 가운데가 유리한 경우입니다. 봉우리의 위치는 그대로인데 산이 좌우로 좁아지고 뾰족해집니다.
- 사람의 출생 체중이 고전적인 예입니다. 너무 작게 태어나도, 너무 크게 태어나도 생존에 불리했고, 중간 범위가 가장 유리했습니다. 그 결과 출생 체중은 비교적 좁은 범위에 모여 있어요.
- 이 유형은 변이를 줄이고 현상을 유지합니다. 환경이 오래 안정적으로 유지될 때 지배적으로 작동해요.
- 흔한 오해 하나 — "안정화 선택은 진화가 멈춘 것"이라는 생각. 아닙니다. 극단값을 가진 개체의 대립유전자가 꾸준히 제거되고 있으니 빈도는 계속 변하고 있습니다. 평균이 안 움직인다고 아무 일도 안 일어나는 게 아니에요.
③ 분단성 선택(disruptive selection). 가장 낯선 유형입니다. 가운데가 불리하고 양쪽 끝이 모두 유리한 경우예요. 하나였던 산이 가운데가 꺼지면서 봉우리 두 개로 갈라집니다.
- 자원이 두 종류로 뚜렷하게 나뉘어 있을 때 생깁니다. 아주 딱딱한 씨앗과 아주 무른 씨앗만 있고 중간 크기 씨앗이 없는 환경이라면, 부리가 아주 두껍거나 아주 얇은 개체가 각각 한쪽을 잘 처리합니다. 어중간한 부리는 양쪽 다 어설프게 다뤄서 가장 불리해져요. 카메룬의 씨앗을 먹는 핀치류에서 부리 크기가 두 무리로 갈라져 나타나는 것이 이런 사례로 연구되어 왔습니다.
- 이 유형이 중요한 이유는 따로 있습니다. 한 집단 안에 서로 다른 두 무리가 생긴다는 것 — 종이 갈라지는 첫 단계와 연결되기 때문이에요. 다음 챕터 종분화의 밑그림이 여기서 그려집니다.
| 유형 | 유리한 쪽 | 분포의 변화 | 집단의 변이 |
|---|---|---|---|
| 방향성 선택 | 한쪽 극단 | 봉우리가 한쪽으로 이동 | 대체로 줄어든다 |
| 안정화 선택 | 중간값 | 봉우리는 그대로, 폭이 좁아짐 | 줄어든다 |
| 분단성 선택 | 양쪽 극단 | 봉우리가 둘로 갈라짐 | 유지되거나 늘어난다 |
그래프 문제로 나오면 순서를 이렇게 확인하세요. ① 화살표(선택압)가 어디를 겨누고 있는가 → ② 새 분포의 봉우리가 몇 개이고 어디에 있는가. 봉우리가 둘이면 무조건 분단성입니다.
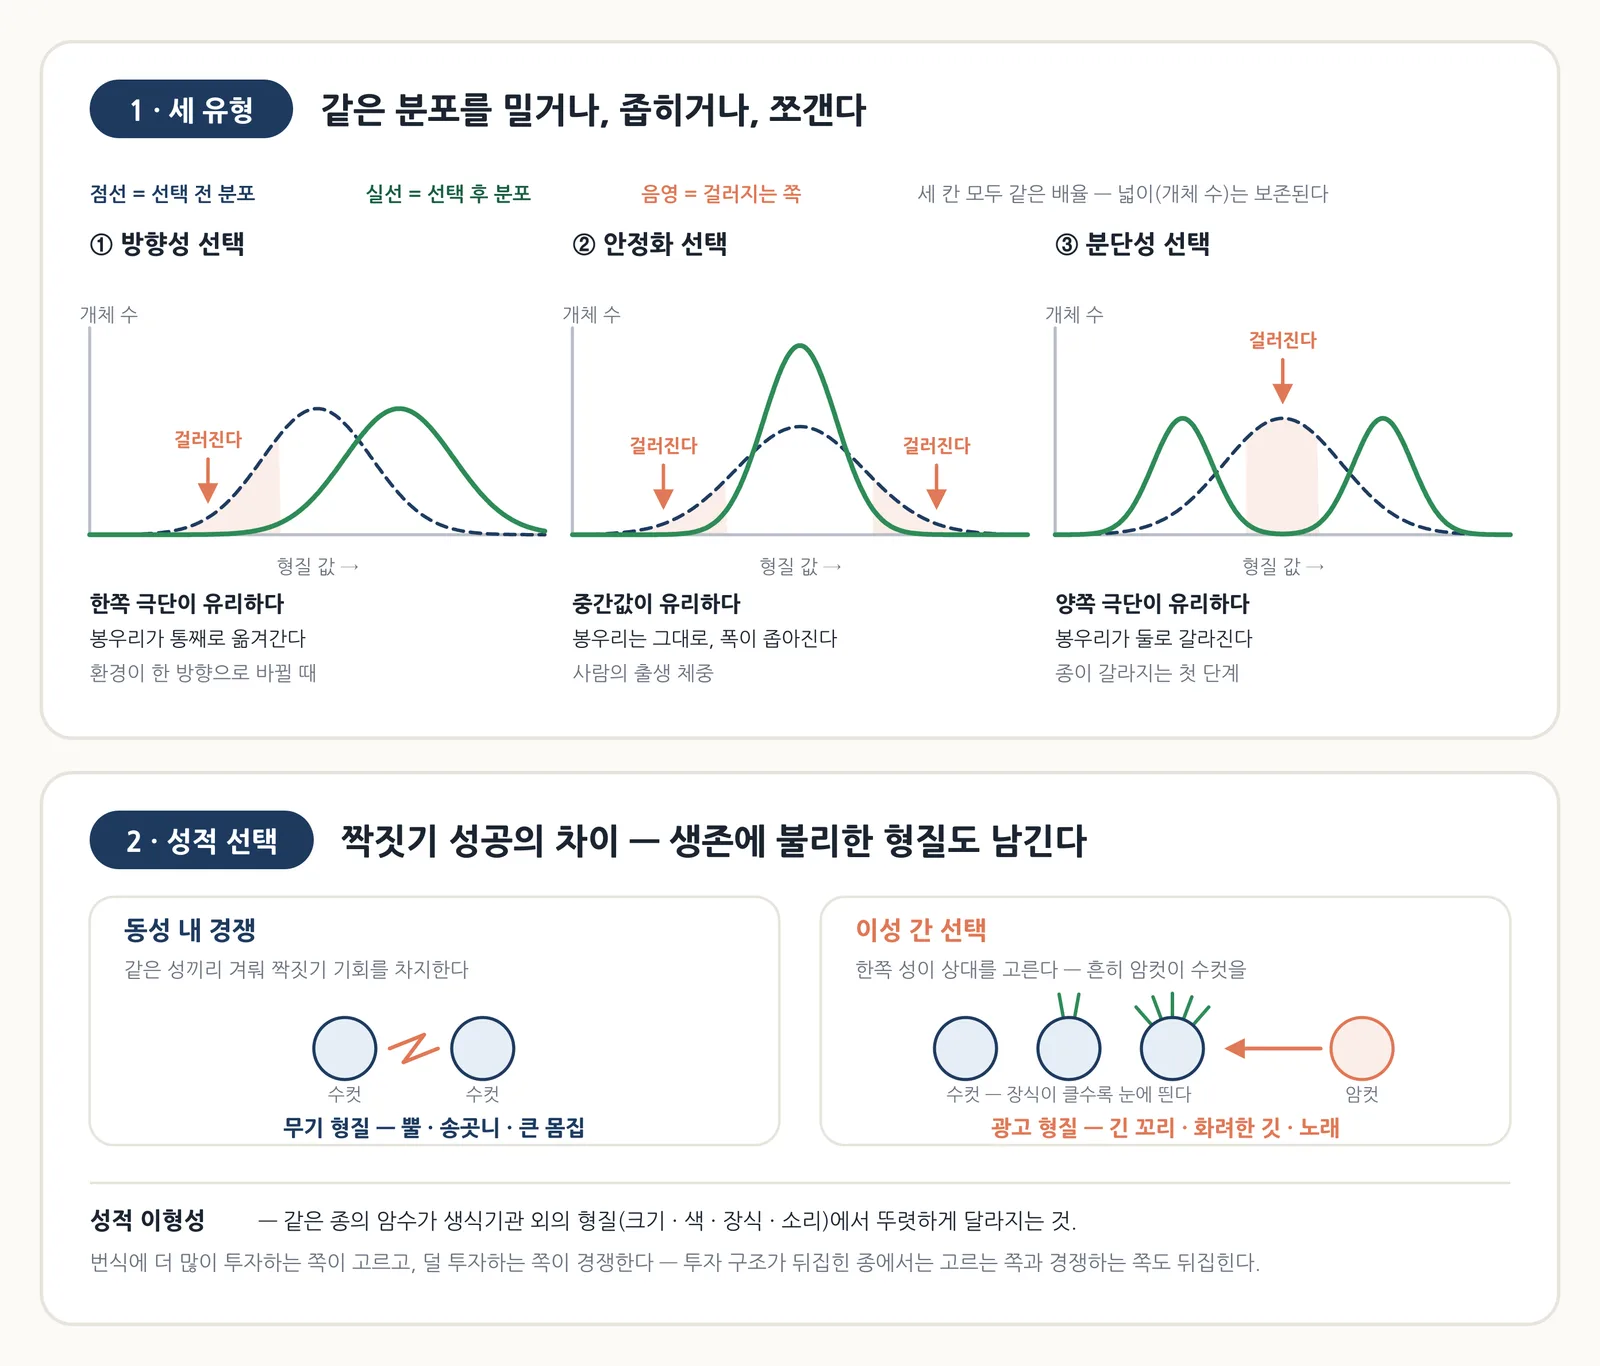
같은 분포를 밀거나, 좁히거나, 쪼갠다 — 송쌤생명과학 자체 제작
성적 선택 — 생존보다 짝짓기
이제 적응도의 정의를 제대로 세워 둔 값을 받을 차례입니다.
공작 수컷의 꼬리를 봅시다. 무겁고, 눈에 띄고, 도망치기 불편합니다. 생존에는 명백히 불리해요. 자연선택이 이런 걸 만들 리가 없어 보입니다.
그런데 적응도의 기준은 생존이 아니라 번식이었죠. 생존에서 약간 손해를 보더라도 짝짓기에서 그보다 큰 이득을 본다면, 그 형질의 대립유전자는 빈도가 올라갑니다. 이렇게 짝짓기 성공의 차이에 의해 일어나는 선택을 성적 선택(sexual selection)이라고 합니다.
그 결과로 나타나는 것이 성적 이형성(sexual dimorphism)입니다. 같은 종의 암컷과 수컷이 생식기관 외의 형질에서 뚜렷하게 달라지는 현상이에요. 크기 차이, 색깔 차이, 뿔이나 장식의 유무, 울음소리 차이가 모두 여기에 해당합니다.
성적 선택은 작동 방식에 따라 두 갈래로 나뉩니다. 이 구분이 시험에 나옵니다.
- 동성 내 경쟁(intrasexual selection) — 같은 성의 개체들끼리 서로 경쟁해서 짝짓기 기회를 차지하는 방식입니다. 대개 수컷끼리의 경쟁으로 나타나요. 직접 싸우기도 하고, 세력권을 차지하거나 서열을 확보해 번식 기회를 독점하기도 합니다. 이 경쟁이 강한 종에서는 수컷이 암컷보다 크고, 뿔이나 송곳니 같은 무기 형질이 발달합니다.
- 이성 간 선택(intersexual selection) — 한쪽 성이 상대 성의 개체를 고르는 방식입니다. 흔히 암컷이 수컷을 고르죠. 이때 고르는 기준이 되는 형질이 세대를 거치며 과장됩니다. 공작의 꼬리, 새의 화려한 깃털, 복잡한 노래와 구애 행동이 여기서 나와요. 무기가 아니라 광고 형질이 발달합니다.
여기서 자연스럽게 따라오는 질문. 왜 하필 그 형질을 고를까요? 긴 꼬리가 새끼를 더 잘 키우는 데 도움이 되는 것도 아닌데요.
널리 받아들여지는 설명은 이렇습니다. 만들고 유지하기에 비용이 많이 드는 장식은, 그것을 감당할 수 있는 개체가 실제로 건강하고 자원을 잘 확보한다는 것을 정직하게 드러내는 신호가 된다는 거예요. 부실한 개체는 흉내 낼 수 없는 신호라서 정보로서 값이 있습니다. 그런 상대를 고르면 좋은 조건의 유전자를 자손에게 물려줄 가능성이 높아지고요. 다만 이 설명이 모든 사례를 다 덮는 것은 아니고, 지금도 활발하게 연구되는 주제입니다.
그리고 성적 선택의 강도가 성별로 다른 이유도 짚어 두면 좋습니다. 대개 번식에 더 많은 자원을 투자하는 쪽이 까다롭게 고르고, 덜 투자하는 쪽이 경쟁합니다. 큰 난자를 만들고 임신·양육을 담당하는 쪽은 한 번의 선택에 걸린 비용이 크니 신중해질 수밖에 없어요. 반대로 투자가 적은 쪽은 기회를 많이 잡는 전략이 유리해집니다. 그래서 투자 구조가 뒤집힌 종에서는 고르는 쪽과 경쟁하는 쪽도 뒤집혀 나타납니다. 성적 선택은 성별의 문제가 아니라 투자 비대칭의 문제라는 뜻이죠.
쌤 한마디 — 성적 선택은 세특 소재로 아주 좋습니다. 다만 쓸 때 조심할 게 하나 있어요. 사람의 사회적 성 역할을 여기에 바로 끌어다 붙이는 글은 좋은 평가를 못 받습니다. 생물학적 설명을 사회적 당위로 번역하는 순간 논리가 무너지거든요. 쓰려면 투자 비대칭이라는 원리에 초점을 맞추고, 그 원리가 뒤집힌 종에서는 결과도 뒤집힌다는 점까지 같이 쓰세요. 원리를 이해했다는 게 그때 드러납니다.
정리하면
적응도는 남긴 자손의 수입니다. 힘이나 수명이 아니에요. 실제로는 다른 유전자형과 견준 상대적 적응도를 쓰고, 가장 많이 남긴 쪽을 1.0으로 놓고 비율로 표시합니다. 그리고 선택은 유전자형이 아니라 표현형에 작용합니다.
자연선택은 세 모양으로 나타납니다. 방향성 선택은 분포를 한쪽으로 밀고, 안정화 선택은 중간값을 유지하며 분포를 좁히고, 분단성 선택은 가운데를 깎아 봉우리를 둘로 쪼갭니다.
성적 선택은 짝짓기 성공의 차이에서 나오고, 생존에 다소 불리한 형질도 유지시킬 수 있습니다. 같은 성끼리 다투는 동성 내 경쟁은 무기 형질을, 상대를 고르는 이성 간 선택은 광고 형질을 발달시킵니다.
그런데 여기서 이상한 점이 하나 남습니다. 선택이 이렇게 계속 깎아 내는데, 왜 집단에는 여전히 변이가 남아 있을까요? 그리고 이렇게 오래 다듬었는데 왜 생물은 완벽하지 않을까요? 다음 글 자연선택이 완벽한 생물을 만들 수 없는 이유에서 이 챕터를 마무리합니다.
틀린 내용이나 더 궁금한 점이 있으면 문의하기로 알려 주세요. 확인한 뒤 고치고, 고친 날짜를 위에 남깁니다.
함께 보면 좋은 글
이 개념과 이어지는 글이에요.