
체액성 면역과 세포성 면역 — 항체와 킬러T세포의 분업
송준호(송쌤)송쌤생명과학입시연구소 대표
적응면역이 클론선택으로 담당 림프구를 골라냈다고 합시다. 그 다음이 문제예요. 골라낸 병력을 어디로 보낼 것인가?
수업에서 저는 칠판에 세포 하나를 크게 그리고 묻습니다. "병원체가 여기, 세포 바깥에 있습니다. 항체가 붙을 수 있습니까?" 있습니다. "그럼 병원체가 이미 세포 안으로 들어갔습니다. 항체가 붙을 수 있습니까?"
못 붙습니다. 항체는 단백질이라 세포막을 통과하지 못해요. 세포 안으로 숨은 바이러스에게 혈액 속 항체는 아무 의미가 없습니다. 적응면역이 두 갈래로 나뉘는 이유는 능력의 차이가 아니라, 병원체가 숨는 '장소'가 두 군데이기 때문입니다.
두 갈래는 대상이 다릅니다
먼저 큰 그림부터 고정하겠습니다.
- 체액성 면역(humoral immunity) — B세포가 형질세포로 분화해 항체를 분비합니다. 항체는 혈액·림프 같은 체액을 타고 돌며 세포 밖에 있는 병원체와 독소를 상대합니다.
- 세포성 면역(cell-mediated immunity) — 세포독성 T세포가 직접 출동해 이미 감염된 우리 몸의 세포를 죽입니다.
여기서 학생들이 가장 많이 흔들리는 지점을 미리 못 박아 둡니다. 세포성 면역의 공격 대상은 병원체가 아니라 '감염된 자기 세포'입니다. 세포독성 T세포는 바이러스를 죽이는 게 아니라, 바이러스 공장이 되어 버린 우리 세포를 죽여 공장을 폐쇄합니다. 이걸 "T세포가 바이러스를 잡아먹는다"로 외우면 서술형에서 반드시 틀립니다.
보조 T세포 — 양쪽을 켜는 중심 스위치
두 갈래를 각각 배우기 전에, 둘 다 붙어 있는 공통 스위치를 먼저 봐야 합니다. 보조 T세포(helper T cell)입니다.
보조 T세포는 직접 병원체를 죽이지 않습니다. 대신 B세포도 켜고 세포독성 T세포도 켭니다. 적응면역 전체의 시동을 거는 자리예요.
어떻게 켜지는지를 순서대로 보겠습니다.
- ① 항원제시 — 수지상세포나 대식세포가 병원체를 삼켜 분해하고, 그 조각을 MHC Ⅱ에 얹어 자기 막 표면에 내겁니다. 이런 세포를 항원제시세포라고 합니다.
- ② 결합 — 그 조각에 맞는 수용체를 가진 보조 T세포가 와서 붙습니다. 수용체가 리간드를 만나 세포 안으로 신호가 넘어가는 구조는 신호 수용에서 본 그대로입니다.
- ③ 활성화·증식 — 보조 T세포가 활성화되어 증식하고, 사이토카인이라는 신호 물질을 분비합니다.
- ④ 양쪽 점화 — 이 사이토카인이 B세포의 분화를 촉진하고, 동시에 세포독성 T세포의 활성화를 돕습니다.
즉 보조 T세포는 선천면역이 잡아온 정보를 받아 적응면역 두 갈래에 동시에 전달하는 중계기입니다. 앞에서 본 수지상세포가 림프절로 달려가는 이유가 바로 이 만남을 성사시키기 위해서였어요.
체액성 면역 — B세포에서 형질세포로
B세포는 자기 수용체로 항원에 직접 결합합니다. 그런데 그것만으로는 대개 부족해요. 같은 항원을 인식한 보조 T세포의 도움까지 받아야 본격적으로 활성화됩니다. 안전장치가 이중으로 걸려 있는 셈입니다.
활성화된 B세포는 증식한 뒤 두 갈래로 분화합니다.
- 형질세포 — 항체 생산 공장입니다. 세포 안이 소포체로 가득 차고, 만들어진 항체를 세포외배출로 쉴 새 없이 내보냅니다. 단백질을 만들어 밖으로 분비하는 세포의 전형이에요.
- 기억 B세포 — 항체를 만들지 않고 오래 남아 다음을 대비합니다.
항체는 면역글로불린이라 불리는 단백질입니다. 긴 사슬 둘과 짧은 사슬 둘이 Y자 모양으로 조립되어 있어요. Y의 두 팔 끝부분은 항체마다 아미노산 서열이 달라 가변부위라 부르고, 여기가 항원결정기와 맞물리는 자리입니다. 나머지는 항체마다 거의 같은 불변부위예요. 단백질의 구조와 기능에서 배운 내용이 그대로 적용되는 예입니다. 네 개의 사슬이 모여 하나의 기능 단위를 만드니 4차 구조이고, 결합의 특이성은 가변부위가 접힌 3차 구조의 모양에서 나옵니다.
항체는 병원체를 '죽이지' 않습니다
여기가 두 번째 큰 오개념입니다. 항체가 세균을 녹이거나 터뜨린다고 쓰는 답안이 많은데, 항체 자체에는 그런 능력이 없어요. 항체가 하는 일은 붙는 것, 그리고 붙어서 표시하는 것입니다. 처리는 다른 장치가 합니다.
| 항체의 작용 | 하는 일 | 결과 |
|---|---|---|
| 중화 | 바이러스나 독소의 결합 부위를 막아버림 | 세포에 달라붙지 못해 감염·독성 차단 |
| 응집 | 여러 병원체를 한꺼번에 얽어 덩어리로 만듦 | 움직임이 막히고 식세포가 한번에 처리 |
| 옵소닌화 | 병원체 표면을 항체로 덮어 표시 | 식세포가 훨씬 쉽게 붙잡아 삼킴 |
| 보체 활성화 | 항체 불변부위가 보체 단백질을 불러 연쇄 반응 개시 | 막공격복합체가 병원체 막에 구멍 |
정리하면 항체는 무기라기보다 표적 지시기에 가깝습니다. 실제 파괴는 식세포작용과 보체가 맡아요. 선천면역에서 배운 장치들이 항체를 만나 정확도를 얻는 구조입니다. 두 체계는 따로 노는 게 아니라 손을 잡습니다.
세포성 면역 — 세포독성 T세포는 감염된 세포를 끕니다
이제 세포 안으로 숨은 쪽입니다. 바이러스에 감염된 세포는 자기 안에서 바이러스 단백질을 만들게 되는데, 우리 몸의 거의 모든 유핵세포는 자기가 만든 단백질 조각을 MHC Ⅰ에 얹어 막 표면에 내겁니다. 정상일 때는 자기 단백질 조각을 내걸고 있고, 감염되면 바이러스 단백질 조각이 걸립니다.
이건 일종의 내부 고발 장치예요. 세포가 "내 안에 이런 게 들어 있습니다"라고 밖에 써 붙이는 겁니다. 막단백질이 세포의 신원과 상태를 바깥으로 알리는 역할을 한다는 세포막의 구조의 내용이 여기서 결정적으로 쓰입니다.
세포독성 T세포는 이 MHC Ⅰ 위의 조각을 읽습니다. 자기 수용체에 맞는 조각이 걸려 있으면 그 세포에 달라붙어 퍼포린과 그랜자임 같은 물질을 방출해요. 퍼포린이 표적 세포막에 구멍을 내고, 그 통로로 들어간 그랜자임이 표적 세포의 세포자살(아포토시스)을 유도합니다. 세포가 스스로 정리되어 죽으면, 그 안에서 조립 중이던 바이러스 입자도 함께 끝납니다.
일을 마친 세포독성 T세포는 떨어져 나와 다음 감염 세포로 옮겨 갑니다. 한 세포가 여러 표적을 연달아 처리해요. 암세포도 정상과 다른 단백질 조각을 내걸기 때문에 같은 방식으로 감시 대상이 됩니다.
| 구분 | 체액성 면역 | 세포성 면역 |
|---|---|---|
| 주역 세포 | B세포 → 형질세포 | 세포독성 T세포 |
| 무기 | 분비된 항체 | 세포 자신이 직접 접촉 |
| 공격 대상 | 체액에 있는 세포 밖 병원체, 독소 | 감염된 자기 세포, 암세포 |
| 인식 방식 | 온전한 항원에 직접 결합 | MHC Ⅰ에 제시된 항원 조각 |
| 대표 사례 | 세균, 세균 독소, 세포 밖 바이러스 입자 | 바이러스 감염 세포, 세포 내 기생 세균 |
| 공통 | 보조 T세포의 도움을 받아 활성화되고, 기억세포를 남긴다 | |
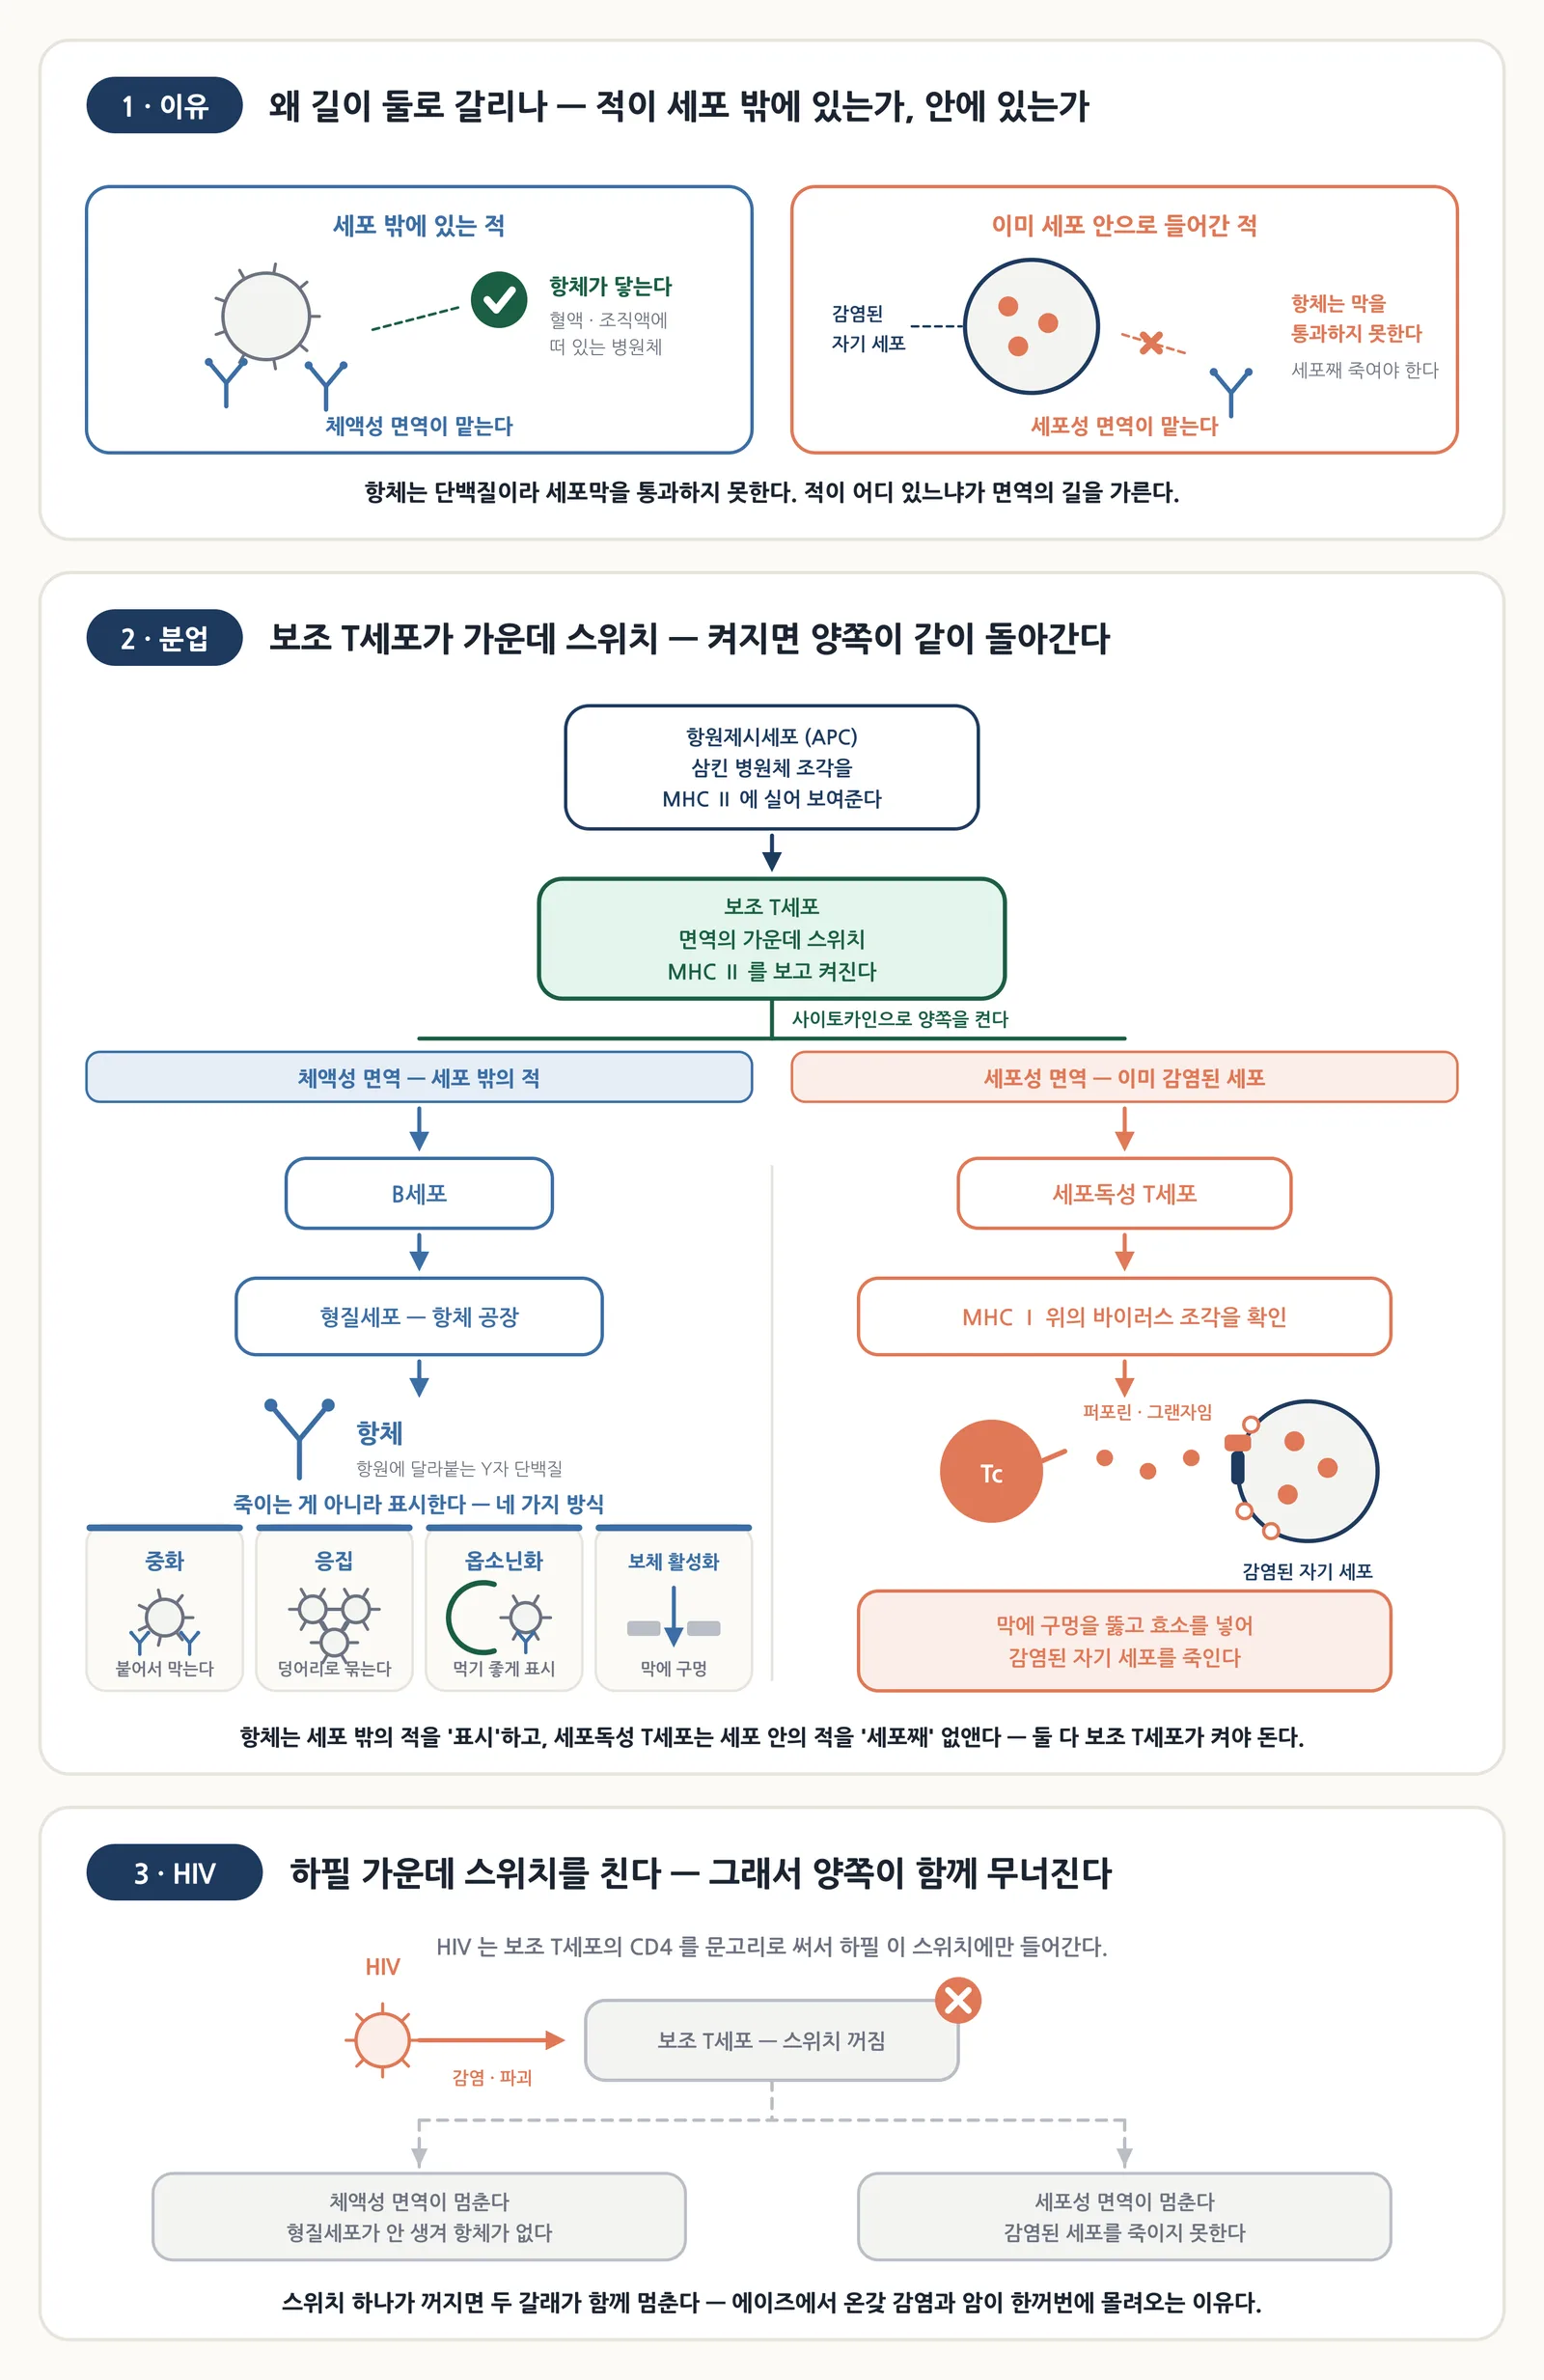
항체는 세포막을 못 지나간다 — 거기서 두 갈래가 갈린다 — 송쌤생명과학 자체 제작
한 번의 감염에서 둘은 같이 돌아갑니다
시험 대비로 둘을 표로 갈라 외우다 보면, 실제로도 따로 일어난다고 착각하기 쉽습니다. 아닙니다. 바이러스 감염 하나를 따라가 보면 두 갈래가 동시에 돌아갑니다.
바이러스 입자가 혈액을 떠다니는 동안에는 항체가 달라붙어 세포에 들어가지 못하게 막습니다(체액성). 이미 들어간 세포는 항체가 손댈 수 없으니 세포독성 T세포가 그 세포를 제거합니다(세포성). 그리고 감염 세포가 죽으면서 밖으로 나온 바이러스 입자는 다시 항체가 받습니다. 두 갈래는 서로의 사각지대를 메웁니다. 어느 한쪽만 고장 나도 방어에 구멍이 생기는 이유예요.
HIV — 스위치를 끄면 전부 무너진다
이 구조를 이해했다면, 왜 어떤 바이러스 하나가 면역 전체를 무너뜨릴 수 있는지도 설명됩니다.
HIV는 보조 T세포를 표적으로 삼아 감염하고 파괴합니다. 앞에서 보조 T세포를 "중심 스위치"라고 했죠. 그 스위치가 사라지면 어떻게 되는지 순서대로 따라가 봅시다.
- 사이토카인이 나오지 않으니 B세포가 제대로 활성화되지 않습니다 → 항체 생산이 무너집니다.
- 도움 신호가 없으니 세포독성 T세포도 충분히 활성화되지 않습니다 → 감염 세포 제거가 무너집니다.
- 결국 체액성과 세포성이 동시에 기능을 잃습니다.
HIV가 무서운 것은 이 바이러스가 특별히 독해서가 아니라, 가장 적은 표적으로 가장 넓은 파괴를 일으키는 자리를 정확히 노리기 때문입니다. 이 상태가 진행된 것이 후천면역결핍증후군(AIDS)이고, 실제로 환자를 위협하는 것은 HIV 자체보다 평소라면 문제없이 막았을 기회감염과 특정 암입니다. 방어선이 사라지니 원래 약한 상대에게 지는 거예요.
쌤 한마디 — 체액성이냐 세포성이냐를 묻는 문제는 딱 한 문장으로 판별됩니다. "지금 병원체가 세포 안에 있나, 밖에 있나?" 밖에 있으면 항체가 붙을 수 있으니 체액성, 안에 있으면 항체가 못 들어가니 세포성입니다. 그리고 어느 쪽 답을 쓰든 보조 T세포는 빠뜨리지 마세요. 서술형에서 이 이름이 들어가고 안 들어가고로 점수가 갈리는 걸 해마다 봅니다.
정리하면
적응면역이 두 갈래인 이유는 병원체가 숨는 장소가 둘이기 때문입니다. 세포 밖은 형질세포가 분비한 항체가 붙잡아 표시하고, 세포 안은 세포독성 T세포가 감염된 세포째로 정리합니다. 항체는 죽이는 무기가 아니라 표적 지시기이고, 실제 파괴는 식세포와 보체 같은 선천면역 장치가 맡습니다. 그리고 두 갈래 모두 보조 T세포라는 하나의 스위치에 물려 있습니다.
그럼 이 싸움이 끝난 뒤 남는 기억세포는 다음번에 무엇을 바꿀까요? 다음 개념에서는 면역 기억과 백신, 그리고 면역이 잘못될 때를 다룹니다. 앞선 두 글은 선천면역과 적응면역의 원리에 있습니다.
틀린 내용이나 더 궁금한 점이 있으면 문의하기로 알려 주세요. 확인한 뒤 고치고, 고친 날짜를 위에 남깁니다.
함께 보면 좋은 글
이 개념과 이어지는 글이에요.