
같은 유전체를 가진 세포가 왜 서로 달라질까 — 세포분화와 차등적 유전자 발현
송준호(송쌤)송쌤생명과학입시연구소 대표
수업하다 보면 학생들이 이 지점에서 한 번씩 멈칫합니다. 내 몸의 모든 세포가 같은 수정란에서 나왔고, 그래서 전부 똑같은 DNA를 가지고 있다고 배웠는데 — 그럼 왜 간세포는 간세포처럼 생겼고 신경세포는 축삭을 1미터씩 뻗고 있을까요.
답은 이미 앞 소단원들에서 다 나왔습니다. 유전자를 가지고 있는 것과 그 유전자를 쓰는 것은 다른 문제이기 때문이에요. 이번 소단원은 지금까지 배운 조절 장치들이 실제로 한 마리의 동물을 만들어내는 과정에 어떻게 동원되는지를 다룹니다.
차등적 유전자 발현이란 무엇인가
차등적 유전자 발현(differential gene expression)은 같은 유전체를 가진 세포들이 서로 다른 유전자 조합을 발현하는 것을 말합니다. 사람의 세포는 200종이 넘는데, 이 차이는 DNA가 달라서 생기는 게 아니라 어떤 유전자를 켜두었느냐가 달라서 생깁니다.
모든 세포에서 공통으로 켜져 있는 유전자도 있습니다. 리보솜 단백질이나 해당과정 효소처럼 살아 있으려면 무조건 필요한 것들이죠. 반면 헤모글로빈 유전자는 적혈구를 만드는 계통에서만, 근수축 단백질 유전자는 근육세포에서만 켜집니다. 전형적인 세포에서 실제로 발현되는 유전자는 전체의 일부에 그치고, 나머지는 조용히 접혀 있어요.
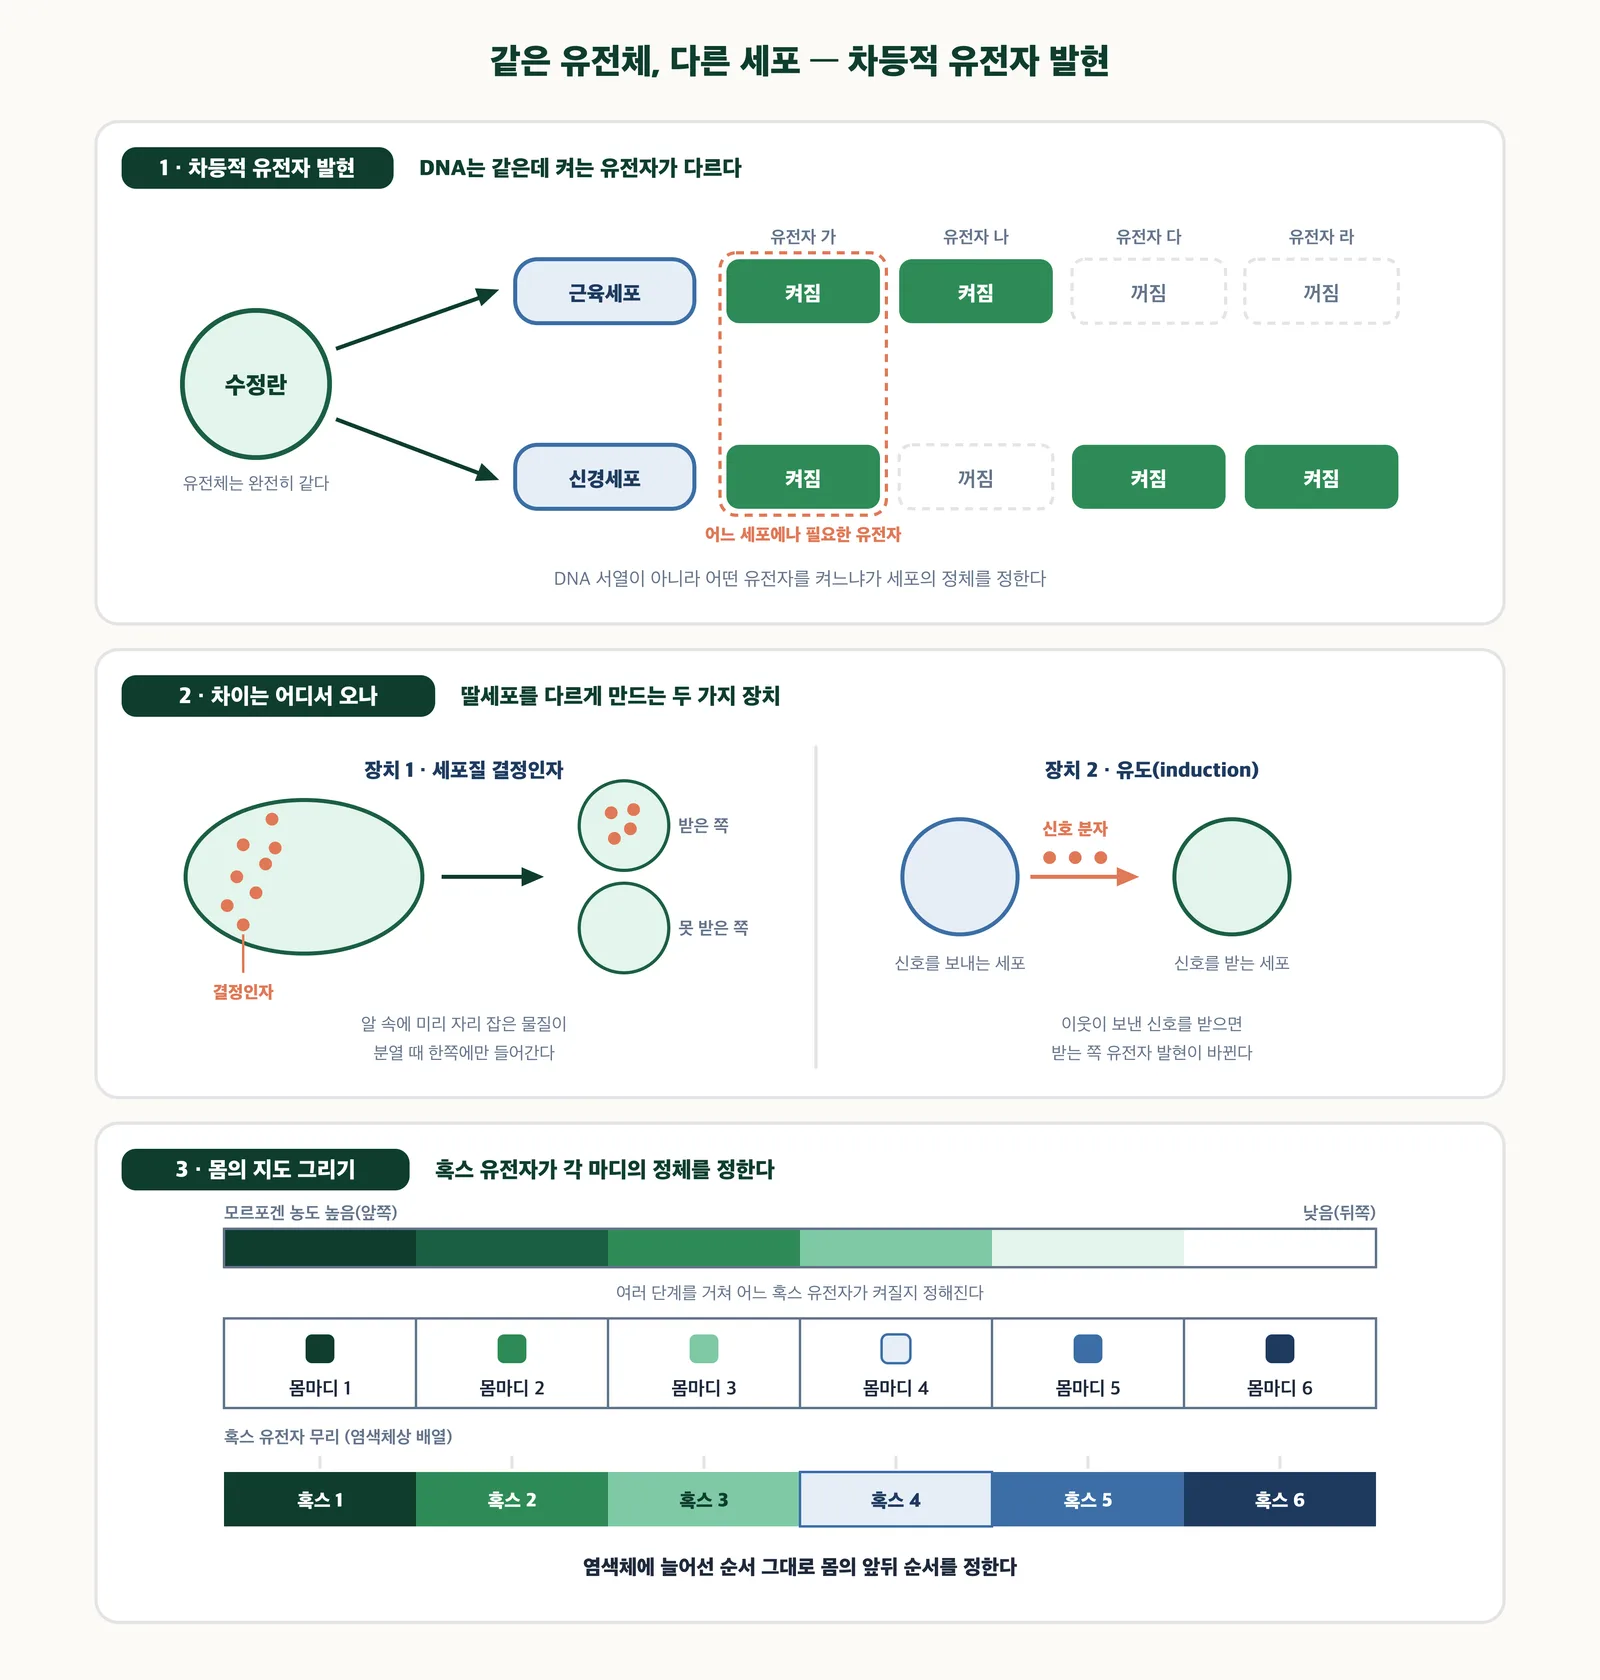
같은 유전체에서 서로 다른 세포가 나오는 원리와, 몸의 앞뒤 축이 정해지는 과정 — 송쌤생명과학 자체 제작
결정과 분화는 어떻게 다른가
이 두 용어는 시험에서 자주 갈리는 지점이라 확실히 구분해 두는 게 좋습니다.
- 결정(determination) — 세포의 운명이 내부적으로 고정되는 단계. 겉모습은 아직 아무것도 바뀌지 않았지만, 이미 되돌릴 수 없습니다. 예를 들어 근육으로 결정된 세포를 떼어내 전혀 다른 곳에 옮겨 심어도 근육이 됩니다.
- 분화(differentiation) — 그 운명이 실제로 겉으로 드러나는 단계. 그 세포에 특징적인 단백질이 대량으로 만들어지고, 모양과 기능이 눈에 보이게 바뀝니다.
결정을 실제로 일으키는 건 마스터 조절 유전자입니다. 근육을 예로 들면 MyoD라는 전사인자가 그 역할을 하는데, 이 유전자가 켜지면 자기 자신의 발현을 유지하면서 동시에 다른 근육 유전자들을 줄줄이 켭니다. 놀라운 건 이걸 근육이 아닌 세포에 억지로 넣어줘도 상당수가 근육세포의 성질을 띠기 시작한다는 점이에요. 전사인자 하나가 세포의 정체 전체를 끌고 갈 수 있다는 걸 보여주는 실험입니다.
첫 번째 차이는 어디서 오나
여기서 자연스럽게 따라오는 질문이 있습니다. 근육세포에서 MyoD가 켜진 이유는 뭘까요? 그 앞의 전사인자 때문이겠죠. 그럼 그건 또 왜? 이렇게 계속 거슬러 올라가면 결국 맨 처음의 비대칭이 어디서 왔는지를 물어야 합니다.
답은 두 가지입니다.
첫째는 세포질 결정인자입니다. 난자의 세포질에는 mRNA와 단백질 같은 물질이 고르게 퍼져 있지 않고 한쪽에 몰려 있습니다. 수정란이 분열할 때 이 물질을 받는 딸세포와 못 받는 딸세포가 갈리고, 그 순간부터 두 세포의 유전자 발현이 달라지기 시작해요. 정보가 DNA가 아니라 세포질에 미리 들어 있었다는 게 핵심입니다.
둘째는 유도(induction)입니다. 이웃한 세포가 보낸 신호 물질이 받는 세포의 수용체에 결합하고, 그 신호가 세포 안으로 전달되어 결국 특정 유전자의 전사를 켜거나 끕니다. 신호 수용 → 전달 → 반응이라는 이 흐름 자체는 세포 신호전달의 세 단계에서 이미 배운 그대로예요. 발생에서 달라지는 건 그 "반응"이 대개 유전자 발현의 변화이고, 그 결과가 세포의 운명 자체를 바꿔놓는다는 점입니다.
정리하면 이렇습니다. 처음의 비대칭은 세포질 결정인자가 만들고, 그 뒤로는 세포들이 서로 신호를 주고받으며 차이를 점점 늘려나갑니다.
몸의 모양은 어떻게 잡히나
세포가 제대로 분화하는 것만으로는 부족합니다. 눈이 될 세포가 발바닥에 생기면 곤란하니까요. 세포들이 제자리에 배치되어 몸의 형태를 만드는 과정을 형태형성(morphogenesis)이라고 하고, 그중에서도 "여기가 앞이고 저기가 뒤다"라는 위치 정보를 세포에게 알려주는 과정을 패턴 형성이라고 부릅니다.
이 위치 정보를 실어 나르는 물질이 모르포겐(morphogen)입니다. 초파리 알에서는 어미가 미리 넣어둔 물질의 mRNA가 알의 한쪽 끝에 몰려 있어서, 번역이 시작되면 그 단백질이 한쪽에서 반대쪽으로 갈수록 옅어지는 농도 기울기가 생깁니다. 세포 입장에서는 주변 농도만 읽어도 자기가 앞쪽인지 뒤쪽인지 알 수 있는 셈이죠.
이 농도 정보는 여러 단계의 유전자들을 거쳐 결국 혹스 유전자(Hox gene)를 켭니다. 혹스 유전자는 각 몸마디가 무엇이 될지를 지정하는 유전자예요. 여기에 아주 유명한 특징이 하나 있는데, 혹스 유전자가 염색체에 늘어서 있는 순서가 그 유전자가 담당하는 몸마디의 앞뒤 순서와 일치합니다. 초파리에서 처음 발견된 이 규칙은 척추동물에서도 그대로 나타나요.
혹스 유전자를 비롯한 이런 유전자들이 공통으로 가지고 있는 약 180개 염기쌍짜리 서열을 호메오박스(homeobox)라고 합니다. 이 부분은 단백질에서 60개 아미노산으로 된 호메오도메인이 되는데, 하는 일은 DNA에 달라붙는 것입니다. 즉 혹스 유전자의 산물은 전사인자예요 — 결국 여기서도 조절의 실체는 전사 개시 단계의 조절이라는 얘기입니다.
쌤 한마디 — 혹스 유전자가 이렇게 유명해진 건 돌연변이체가 워낙 극적이기 때문입니다. 안테나페디아 돌연변이 초파리는 더듬이가 있어야 할 자리에 다리가 자랍니다. 다리 자체는 완전히 정상이에요. 잘못된 건 "여기는 다리를 만드는 자리다"라는 주소 정보뿐입니다. 이런 돌연변이를 계통적으로 찾아낸 에드워드 루이스, 크리스티아네 뉘슬라인폴하르트, 에릭 위샤우스는 1995년 노벨 생리의학상을 받았습니다. 초파리 알에 무작위로 돌연변이를 일으켜 이상하게 생긴 배아를 하나하나 골라내는, 상상 이상으로 노동집약적인 연구였습니다.
세포를 없애는 것도 발생이다
발생을 "세포를 만드는 과정"으로만 생각하기 쉬운데, 실제로는 정확히 계획된 대로 세포를 없애는 것도 발생의 일부입니다. 사람 손은 발생 초기에 주걱처럼 생겼다가, 손가락 사이 세포들이 죽어 없어지면서 다섯 손가락으로 분리됩니다. 이 예정된 세포 죽음이 아폽토시스예요.
이게 얼마나 정밀한지 보여주는 예가 꼬마선충입니다. 이 동물은 발생 과정에서 만들어지는 체세포가 몇 번째 분열에서 어떤 세포가 되는지까지 전부 정해져 있고, 그중 131개가 정확히 같은 시점에 아폽토시스로 제거되어 자웅동체 성체에는 959개의 체세포가 남습니다. 개체마다 편차가 있는 게 아니라 매번 같은 세포가 죽어요. 이 계보를 전부 추적한 연구로 시드니 브레너, 로버트 호비츠, 존 설스턴이 2002년 노벨 생리의학상을 받았습니다.
이 단원을 어떻게 정리하면 좋을까
Ch.18을 여기까지 오면 조절 장치가 꽤 여러 개 나왔습니다. 세균의 오페론, 염색질 구조, 전사인자, 전사 후 조절, 그리고 앞 소단원의 miRNA와 RNA 간섭까지요. 이번 소단원의 역할은 이 장치들이 따로 노는 게 아니라, 한 개체를 만드는 하나의 프로그램으로 맞물려 돌아간다는 걸 보여주는 것입니다.
그래서 이 부분을 외울 때는 용어를 따로 나열하지 말고 흐름으로 붙여서 기억하세요. 세포질 결정인자와 유도로 첫 차이가 생기고 → 그 차이가 서로 다른 전사인자 조합을 만들고 → 그 조합이 마스터 조절 유전자를 켜서 운명을 결정하고 → 결정된 세포가 분화한다. 여기에 모르포겐과 혹스 유전자가 "어디에" 무엇을 놓을지를 얹는 거죠.
그리고 마지막 질문 하나. 이 프로그램이 고장 나면 어떻게 될까요? 세포 주기를 조절하는 유전자에 돌연변이가 생겨 "언제 분열할지"를 판단하는 기능 자체가 무너지는 상황 — 그게 암이고, 개념 18.5의 주제입니다.
틀린 내용이나 더 궁금한 점이 있으면 문의하기로 알려 주세요. 확인한 뒤 고치고, 고친 날짜를 위에 남깁니다.
함께 보면 좋은 글
이 개념과 이어지는 글이에요.