
종분화의 속도와 유전학 — 얼마나 걸리고, 유전자는 몇 개나 바뀌는가
송준호(송쌤)송쌤생명과학입시연구소 대표
여기까지 오면서 우리는 무엇이 종을 나누는지(생식적 격리), 어떻게 나뉘는지(이소적·동소적 종분화), 나뉜 뒤 경계에서 무슨 일이 벌어지는지(잡종 지대)를 봤습니다. 이제 남은 질문 두 개를 정리합니다.
시간이 얼마나 걸리는가. 그리고 유전자가 얼마나 많이 바뀌어야 하는가.
이 두 질문이 마지막에 오는 이유가 있습니다. 앞의 내용은 "종분화가 일어난다"는 것을 설명했지만, 그게 지구 생명의 역사 전체를 만들어 낸 과정이라고 말하려면 규모의 문제를 통과해야 하기 때문이에요. 시간이 턱없이 오래 걸리거나 유전적 개조가 감당 못 할 만큼 커야 한다면, 종분화로 대진화를 설명할 수 없습니다.
화석 기록이 보여 주는 두 가지 양상
종분화에 걸린 시간을 알아볼 수 있는 유일한 직접 기록이 화석입니다. 그런데 화석 기록을 실제로 들여다보면 서로 달라 보이는 두 패턴이 함께 나옵니다.
패턴 하나 — 점진적 변화. 한 계열을 지층을 따라 추적했을 때, 형태가 오랜 기간에 걸쳐 조금씩 꾸준히 바뀌는 경우입니다. 중간 단계가 층층이 남아 있어 변화를 연속적으로 따라갈 수 있어요. 미세한 화석이 대량으로 남는 해양 플랑크톤 같은 자료에서 이런 계열이 보고됩니다.
패턴 둘 — 나타났다가 오래 머물고, 갑자기 바뀜. 이쪽이 훨씬 흔합니다. 어떤 종이 화석 기록에 등장하면 그 뒤로 형태가 거의 변하지 않은 채로 아주 긴 시간을 버팁니다. 그러다 비교적 짧은 구간에서 형태가 확 달라진 형태가 나타나요. 중간 단계는 잘 보이지 않습니다.
이 두 번째 패턴을 설명하려고 1972년에 나일스 엘드리지와 스티븐 제이 굴드가 제시한 것이 단속평형(punctuated equilibrium)입니다. '평형(오랜 정체) + 단속(짧은 변화 구간)'이라는 이름 그대로예요. 화석 기록에 중간 단계가 드문 것은 기록이 빠져서만이 아니라, 실제로 변화가 짧은 시간에 집중되기 때문이라는 주장입니다.
쌤 한마디 — 이 단원에서 가장 많이 틀리는 지점입니다. 단속평형을 "진화가 도약한다", "한 세대에 갑자기 새로운 종이 생긴다"로 이해하면 완전히 틀립니다. 여기서 '짧다'는 건 지질학적 시간 기준이에요. 어떤 종의 형태가 5만 년에 걸쳐 자리를 잡았다고 해 봅시다. 수백만 년 단위로 쌓인 지층에서 5만 년은 거의 한 겹이라 '갑자기'처럼 보입니다. 그런데 세대로 환산하면 수만 세대예요. 자연선택이 일할 시간으로는 충분히 깁니다. 단속평형은 자연선택을 부정하는 이론이 아니라, 선택이 작용하는 속도가 시기에 따라 크게 달라진다는 이론입니다. 그리고 하나 더 — 정체 구간에 진화가 멈춘 게 아닙니다. 화석에 남는 겉모습이 크게 안 변한 것이지, 그 아래에서 유전적 변화는 계속 일어나고 있었습니다.
그래서 실제로 얼마나 걸리는가
화석과 연대 측정 자료를 모아 종분화에 걸린 시간을 추정한 연구들이 있습니다. 84개의 동식물 집단을 모아 본 조사에서 나온 범위가 이렇습니다.
| 구분 | 기간 | 사례 |
|---|---|---|
| 가장 짧은 쪽 | 약 4,000년 | 우간다 나부가보호의 시클리드 |
| 가장 긴 쪽 | 약 4,000만 년 | 일부 딱정벌레 집단 |
| 평균 | 약 650만 년 | — |
편차가 1만 배입니다. 여기서 끌어낼 결론은 "종분화에 X년 걸린다"가 아니라 "종분화의 속도에는 정해진 값이 없다"는 쪽이에요. 앞 글들에서 본 것과 이어 보면 납득이 갑니다. 배수성에 의한 종분화는 한 세대면 끝나고, 이소적 종분화는 두 집단이 얼마나 다른 환경에 놓이느냐에 따라 천차만별입니다.
하나 더 구분해 둘 게 있습니다. 종분화가 시작돼 완료되기까지 걸리는 시간과 한 계통에서 종분화 사건이 일어나는 간격은 다른 값입니다. 앞의 표는 주로 뒤쪽, 즉 '얼마나 자주 갈라지는가'에 가깝습니다. 실제로 갈라지는 과정 자체는 그보다 훨씬 짧게 끝나는 경우가 많아요. 대부분의 시간은 아무 일도 일어나지 않은 채 흘러갑니다 — 단속평형의 '평형' 구간이 바로 그 시간이고요.
유전자는 몇 개나 바뀌어야 하는가
이제 두 번째 질문입니다. 종이 갈라지려면 유전체가 통째로 개조돼야 할까요? 직관적으로는 그래야 할 것 같습니다. 종이 다르다는 건 큰 차이니까요.
그런데 연구 결과는 다른 답을 내놓습니다. 적은 수의 유전자 변화만으로도 생식적 격리가 크게 일어날 수 있습니다. 두 사례를 보겠습니다.
사례 ① 꽃 색과 수분자 — 원숭이꽃의 YUP 유전자좌
북아메리카의 원숭이꽃(Mimulus) 두 종이 있습니다.
| Mimulus lewisii | Mimulus cardinalis | |
|---|---|---|
| 꽃 색 | 분홍색 | 붉은색 |
| 주된 수분자 | 뒤영벌 | 벌새 |
두 종은 분포가 겹치는 곳에서도 거의 섞이지 않습니다. 수분자가 서로 다르기 때문이에요. 벌은 분홍 쪽만 찾고 벌새는 붉은 쪽만 찾으니, 꽃가루가 종을 건너갈 일이 별로 없습니다. 전형적인 접합 전 장벽이죠.
그런데 이 장벽을 떠받치는 유전적 기반이 놀랍도록 단순했습니다. 꽃잎의 카로티노이드 색소 유무를 좌우하는 YUP이라는 유전자좌 하나가 색 차이의 상당 부분을 만들고 있었어요. 연구자들은 두 종 사이에서 이 유전자좌만 서로 맞바꾼 계통을 만들어 야외에 내놓았습니다.
결과는 분명했습니다. M. cardinalis에 M. lewisii의 YUP 대립유전자를 넣었더니 꽃이 진한 분홍색이 됐고, 야생형에 비해 벌의 방문이 수십 배로 늘었습니다(보고된 수치는 74배). 반대 방향으로 바꾼 계통에서는 벌새의 방문이 크게 늘었어요.
이 실험이 말하는 바는 이렇습니다. 유전자좌 하나에 생긴 변화가 수분자를 바꾸고, 수분자가 바뀌면 유전자 흐름이 끊깁니다. 종분화에 유전체 전체의 개조가 필요한 게 아니라, 격리에 직접 관여하는 형질을 건드리는 소수의 변화만으로도 문이 닫힐 수 있다는 뜻이에요.
사례 ② 물고기의 체색과 시각 — 빅토리아호 시클리드
앞의 두 글에 계속 나왔던 시클리드가 마지막으로 한 번 더 나옵니다. 이번에는 유전자 수준입니다.
Pundamilia의 푸른 종과 붉은 종은 서로 다른 수심에서 번식합니다. 물속에서는 짧은 파장(푸른빛)이 먼저 흡수되기 때문에, 깊은 곳일수록 붉은 쪽으로 치우친 빛 환경이 됩니다. 얕은 곳은 넓은 파장의 빛이 그대로 들어오고요.
연구진이 두 종의 LWS 옵신 유전자(장파장에 반응하는 시각 색소를 만드는 유전자)를 비교했더니, 두 종이 서로 다른 대립유전자를 갖고 있었습니다. 깊은 곳에 사는 종은 붉은빛에 더 민감한 쪽이었어요. 그리고 각 종의 암컷이 선호하는 수컷의 색은 자기 종이 사는 빛 환경에서 가장 잘 보이는 색과 맞아떨어졌습니다.
그림이 맞춰집니다. 서식 수심의 빛 환경 → 그 환경에 맞는 시각 유전자가 선택됨 → 잘 보이는 색의 수컷이 선택됨 → 수컷의 체색이 그 방향으로 진화 → 암컷의 선호와 수컷의 형질이 짝을 이뤄 갈라짐 → 행동적 격리 성립. 시각 유전자 하나의 차이가 짝 선택이라는 행동을 거쳐 종의 경계로 이어진 겁니다.
다만 균형 잡힌 문장으로 정리해 둡시다. 모든 종분화가 유전자 한두 개로 되는 건 아닙니다. 격리에 관여하는 유전자 수는 사례마다 크게 다르고, 많은 유전자가 조금씩 기여하는 경우도 흔합니다. 요점은 "항상 적다"가 아니라 "반드시 많아야 하는 건 아니다"예요. 종분화의 문턱이 생각보다 낮을 수 있다는 것이 이 연구들의 의미입니다.
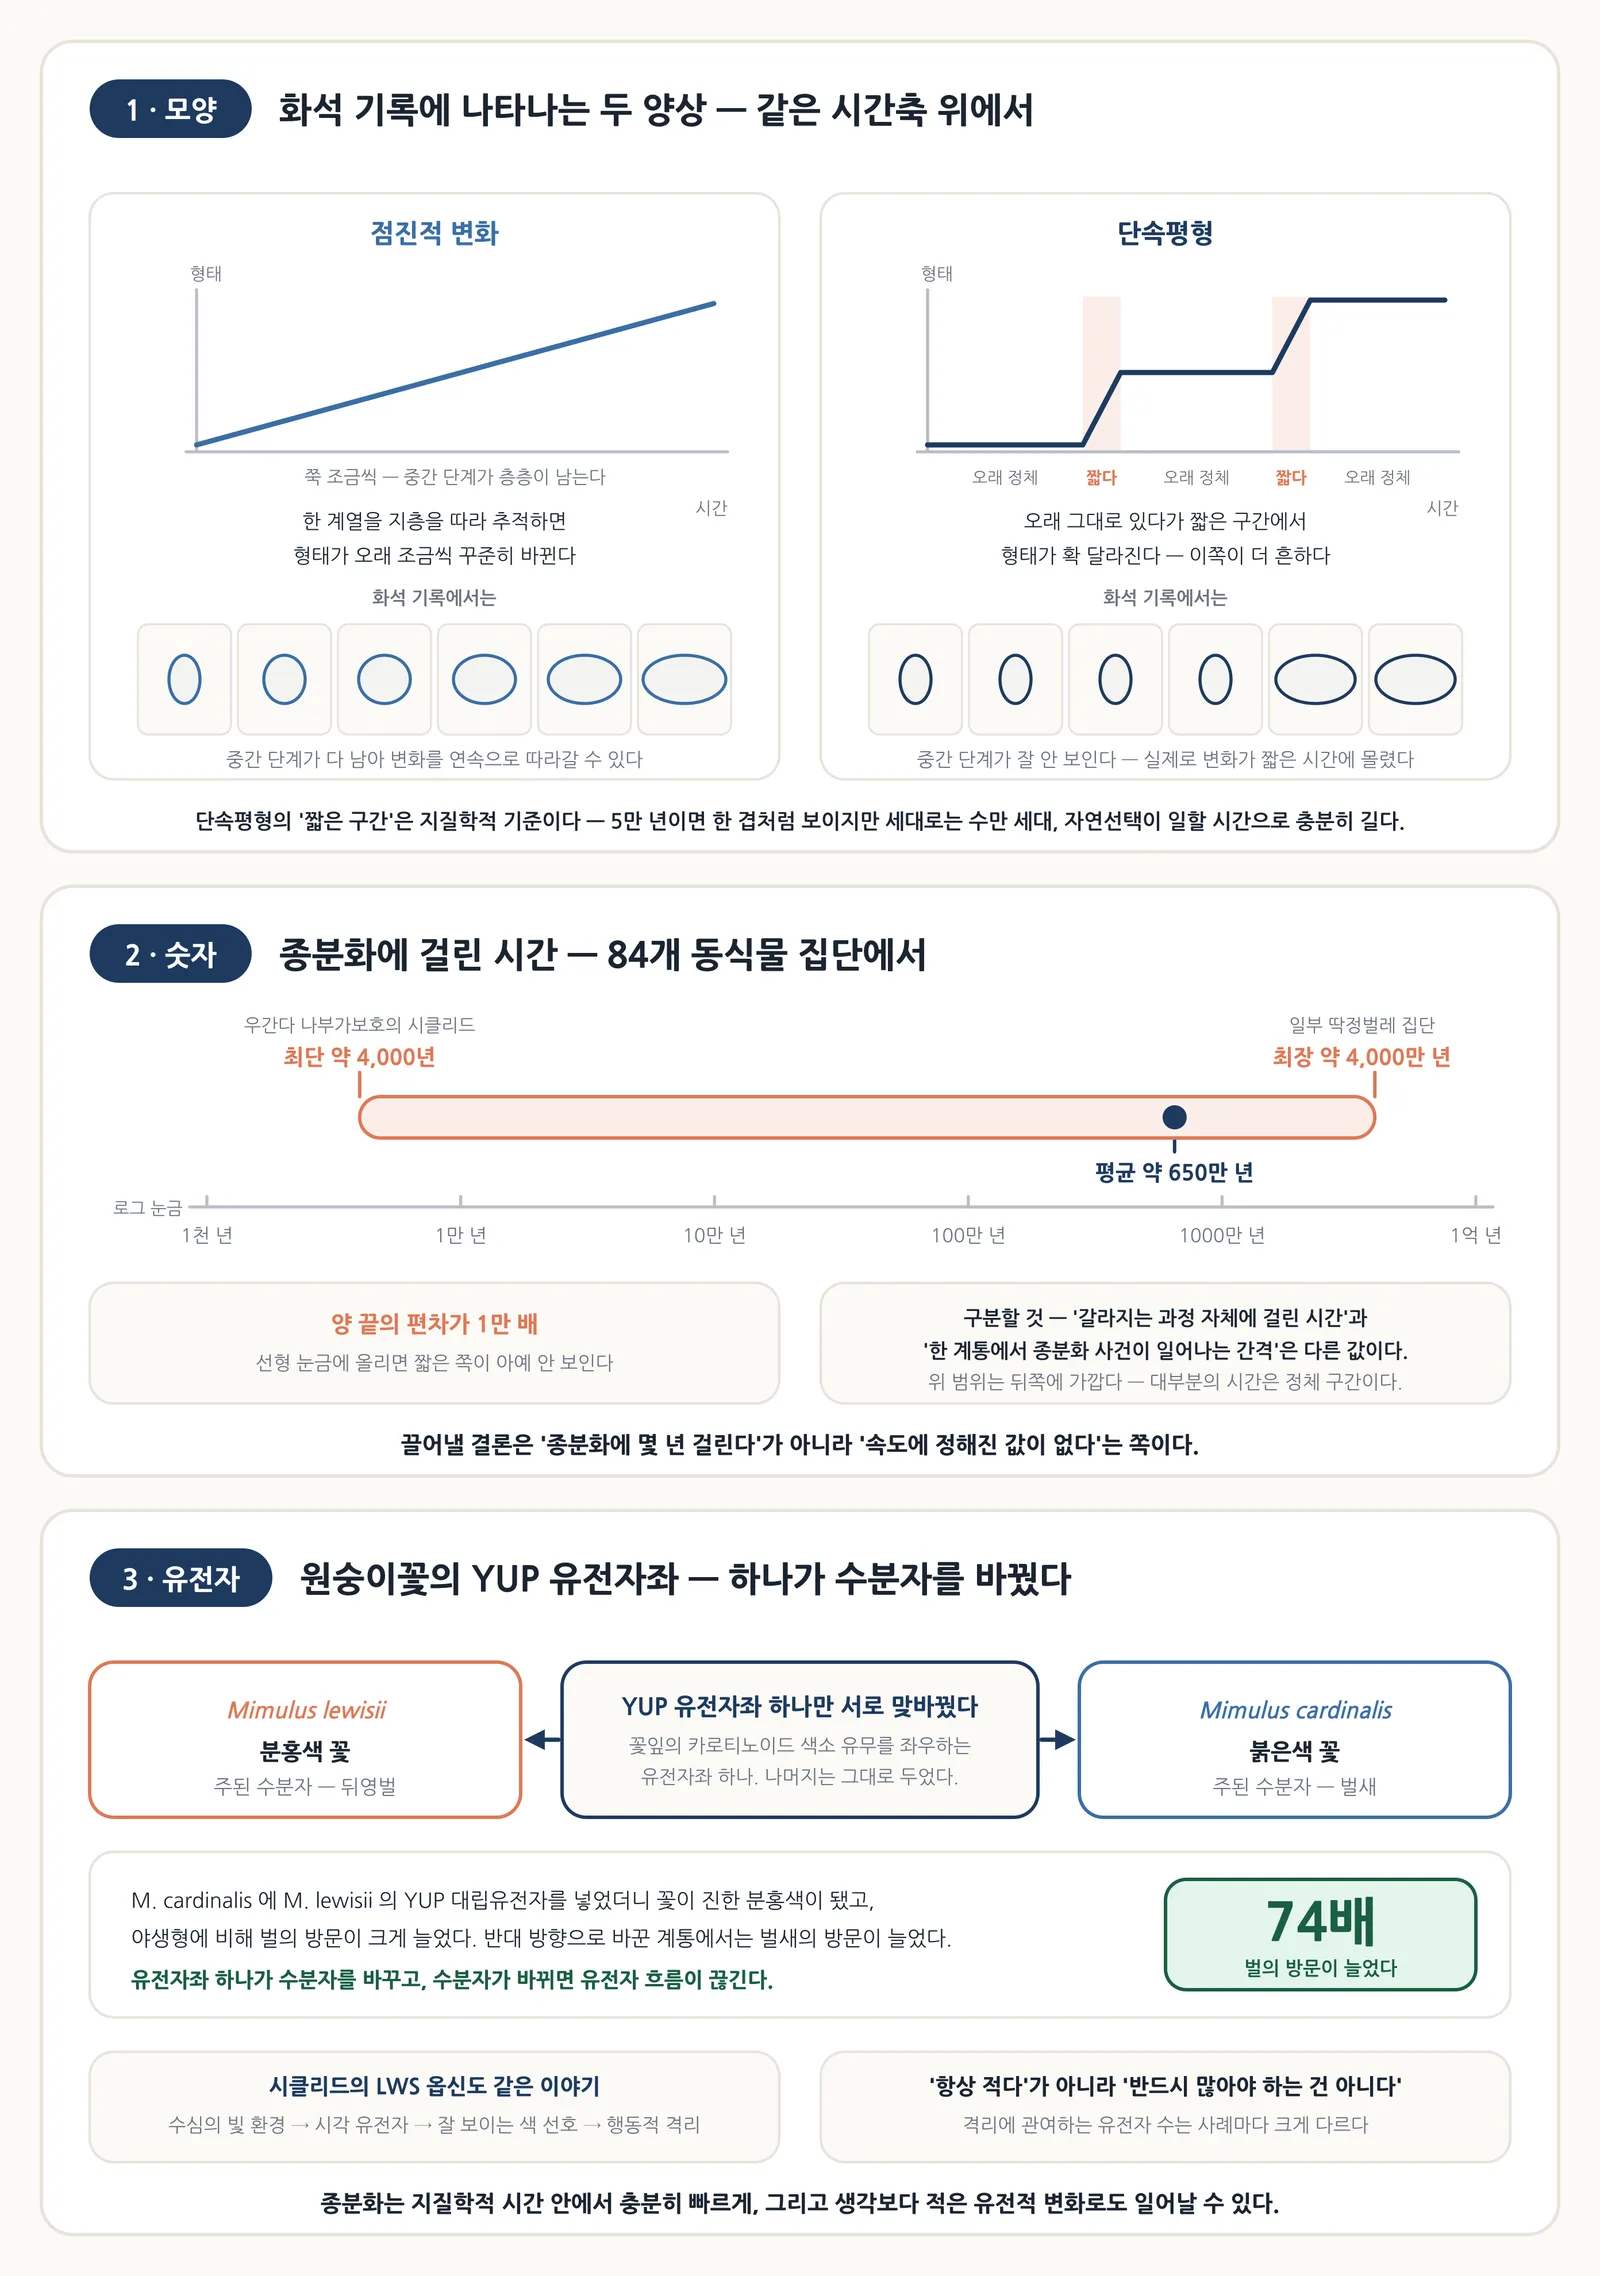
단속평형과 점진적 변화 — 화석에서 다르게 보이는 두 양상 — 송쌤생명과학 자체 제작
종분화는 소진화와 대진화를 잇는 경첩
마지막으로 이 챕터가 진화 단원 전체에서 어디에 놓이는지를 짚겠습니다.
| 층위 | 다루는 것 | 단위 |
|---|---|---|
| 소진화 | 집단 내 대립유전자 빈도의 변화 | 한 집단 안 |
| 종분화 | 하나의 유전자 풀이 둘로 갈라짐 | 집단과 집단 사이 |
| 대진화 | 생물 다양성의 큰 패턴 — 새로운 분류군의 등장, 대량 멸종, 적응 방산 | 지질학적 시간과 계통 전체 |
가운데 칸이 없으면 양쪽이 이어지지 않습니다. 소진화만으로는 한 집단이 변하는 것까지만 설명되고, 생물이 여러 갈래로 늘어나는 일은 설명되지 않아요. 종분화가 그 다리입니다. 집단 안에서 빈도가 바뀌던 일이 유전자 흐름의 차단과 만나면 계통이 하나에서 둘로 늘어나고, 그 일이 수없이 반복되면서 여기에 멸종이 겹치면 오늘날의 생물 다양성이라는 큰 그림이 나옵니다.
그리고 앞에서 본 두 답이 이 다리를 실제로 건널 수 있게 해 줍니다. 종분화는 지질학적 시간 안에서 충분히 빠르게 일어날 수 있고(4,000년짜리 사례가 있습니다), 필요한 유전적 변화가 반드시 대규모일 필요도 없습니다(YUP 하나가 수분자를 바꿨습니다). 두 조건이 다 충족되니, 우리가 아는 종분화 기작으로 대진화의 규모를 설명하는 데 무리가 없어요.
정리하면
화석 기록에는 점진적 변화와 단속평형의 두 양상이 모두 나타나며, 후자가 더 흔합니다. 단속평형의 '짧은 변화 구간'은 지질학적 기준으로 짧다는 뜻이고 세대로는 수만 세대에 이르므로, 도약적 진화를 주장하는 이론이 아닙니다. 정체 구간에도 유전적 변화는 계속됩니다.
종분화에 걸리는 시간은 4,000년에서 4,000만 년까지 편차가 극심하며(평균 약 650만 년), 정해진 값이 없습니다. 유전적으로는 소수의 변화만으로도 격리가 성립할 수 있습니다 — 원숭이꽃의 YUP 유전자좌 하나가 수분자를 바꿔 유전자 흐름을 끊었고, 시클리드의 LWS 옵신 차이가 짝 선택을 거쳐 행동적 격리로 이어졌습니다.
Ch.24는 여기서 끝납니다. 이 챕터를 한 문장으로 줄이면 이렇습니다. 종은 유전자 흐름이 끊기는 지점에서 갈라지고, 그 끊김은 생각보다 빠르게, 생각보다 적은 유전적 변화로도 일어날 수 있다.
챕터 전체를 되짚고 싶다면 종개념 → 생식적 격리 → 이소적·동소적 종분화 → 잡종 지대의 순서로 읽으면 논리가 한 줄로 이어집니다. 진화의 기본 틀이 흐릿하다면 다윈은 무엇을 새로 말했나와 자연선택과 흔한 오해들로 돌아가 보세요.
틀린 내용이나 더 궁금한 점이 있으면 문의하기로 알려 주세요. 확인한 뒤 고치고, 고친 날짜를 위에 남깁니다.
함께 보면 좋은 글
이 개념과 이어지는 글이에요.